小胶质SPP1-ITGB1环路驱动卒中后慢性疼痛分子机制的研究
1.1 动物模型构建
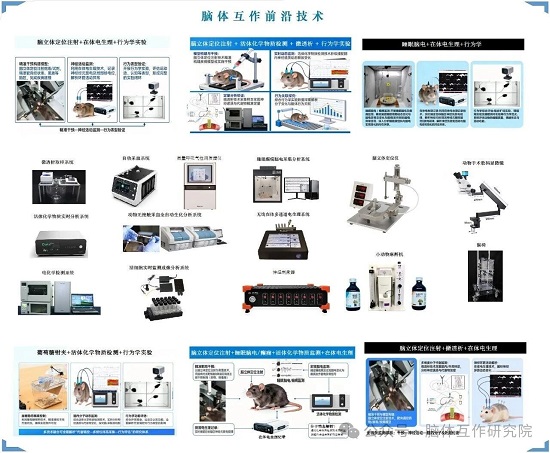
构建两种核心动物模型,一是丘脑出血模型,将 IV 型胶原酶注射至小鼠丘脑腹后外侧核 VPL,模拟人丘脑出血病理,设置假手术组作为对照;二是小胶质特异性光遗传激活模型,借助 CX3CR1 - CreER工具小鼠,在小胶质细胞上特异性表达光敏感蛋白 cOpn5,通过蓝光照射实现单纯激活小胶质,排除脑组织出血坏死带来的混杂干扰。
1.2 行为学检测
采用 Von - Frey 纤维丝测试评估小鼠机械痛觉超敏的表型,通过缩爪阈值反映疼痛敏感程度;利用转棒实验检测小鼠运动协调能力,区分疼痛表型与运动功能损伤。
1.3 药理学干预
运用多种工具药物开展干预:BLZ945 用于全身性耗竭脑内小胶质细胞;BBG 抑制 P2X7 受体;GLPG0187、pyrintegrin 分别作为整合素的拮抗剂与激动剂;使用 SPP1 中和抗体阻断胞外 SPP1 功能;Cenicriviroc、vCCI 分别用于抑制 CC 趋化因子相关信号;局部给予 ATPγS 模拟损伤释放的 ATP,注射重组 SPP1 蛋白开展回补实验。
1.4 遗传操作手段
使用全身 Spp1 敲除小鼠;构建小胶质细胞特异性条件敲除小鼠Spp1 - cKO、Itgb1 - cKO,实现目的基因仅在小胶质中删除;利用 MG1.2 血清型 AAV - CRISPR 病毒,在丘脑 VPL 脑区局部敲除目标基因,实现脑区局部的基因编辑。
1.5 组学、分子生物学与形态学技术
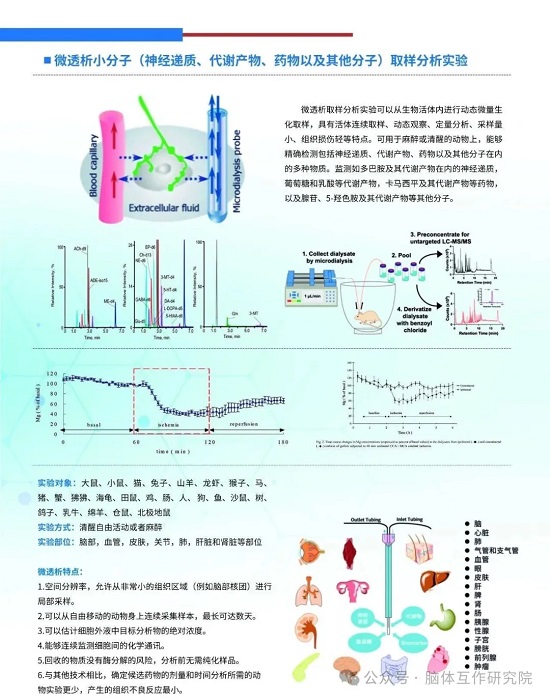
采用 Smart - seq3 单细胞 RNA 测序获取丘脑组织的细胞转录信息,搭配 CellChat 开展细胞细胞通讯分析,预测配体受体相互作用关系;结合蛋白免疫印迹、qPCR、免疫荧光、RNAscope 原位杂交、ELISA,检测基因、蛋白的表达与定位。
1.6 电生理与在体活体记录技术
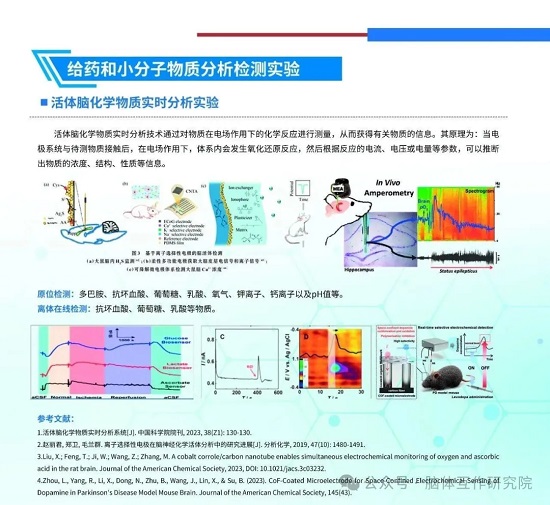
借助脑片全细胞膜片钳记录丘脑神经元电生理活动,评价神经元兴奋性;光纤光度记录技术采集前扣带回 ACC 脑区的神经元钙信号,解析疼痛发生过程中高级脑环路的活动改变;c - Fos 免疫染色标记神经元的激活状态。
2.1 小胶质细胞是 CPSP 发生的必要且充分条件
首先建立丘脑出血模型,使用 BLZ945 清除脑内小胶质细胞,结果显示,小胶质耗竭之后,丘脑病灶周边的小胶质聚集现象消失,丘脑出血诱导产生的机械痛觉超敏表型得到消除,同时小鼠的运动功能损伤也得到改善。
研究进一步利用光纤光度记录技术观察前扣带回 ACC 脑区的神经元活动,丘脑出血模型小鼠受到无害的机械刺激时,ACC 脑区会出现异常升高的神经元钙信号,代表痛觉信号发生异常放大;而清除小胶质之后,这种异常的皮层神经元激活现象不再出现。
为进一步验证仅仅激活小胶质是否就可以诱发疼痛,研究采用光遗传学工具特异性激活丘脑的小胶质细胞,不施加脑出血损伤。光刺激之后小胶质转变为活化形态,丘脑神经元出现明显激活,小鼠产生持续性的机械痛觉超敏表型。
结论:小胶质细胞的激活对于 CPSP 既是必要条件,同时也是充分条件,单纯激活小胶质细胞,就能够复刻丘脑出血之后的神经元过度兴奋以及机械痛敏表型。
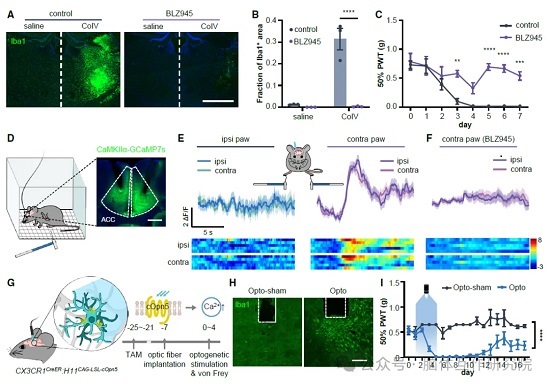
图 1 围绕小胶质细胞和卒中后疼痛的因果关系设计多组实验。
2.2 单细胞转录组筛选,锁定 SPP1 为小胶质关键效应分子
对丘脑出血 7 天的丘脑血肿周边组织进行单细胞测序,对比假手术组,小胶质细胞中大量疾病相关小胶质特征基因上调,其中 Spp1 是上调变化最为显著的基因。蛋白层面检测同样证实,丘脑出血之后 SPP1 蛋白水平持续升高;预先清除小胶质细胞,则脑出血无法诱导 SPP1 的表达上调,证实活化小胶质是 SPP1 的主要细胞来源。
在光遗传单纯激活小胶质的模型中,单细胞测序结果同样观察到 Spp1 显著上调,免疫荧光染色也验证 SPP1 蛋白表达上升。对小胶质做亚群细分后发现,Spp1 特异性高表达在活化状态的小胶质亚群,而稳态的小胶质几乎不表达该基因。两套完全不同的动物模型共同指向同一个分子,提示 SPP1 很可能是介导小胶质致痛效应的关键分子。同时现有人类脑出血的相关研究也观察到血肿周边小胶质高表达 SPP1,说明该发现具备潜在临床参考价值。
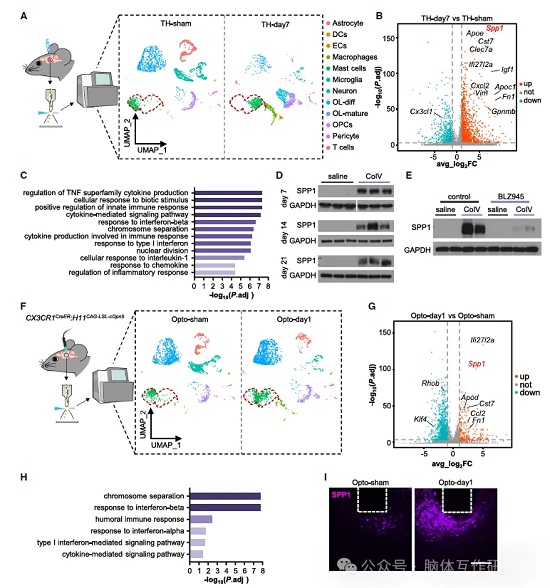
图 2 开展单细胞转录组测序,分别解析丘脑出血模型、光遗传小胶质激活模型的丘脑组织细胞转录特征。
2.3 SPP1 是介导机械痛觉超敏的必要且充分分子,下游调控 CC 趋化因子微环境
细胞通讯分析预测 SPP1 是小胶质向外输出的最显著变化的信号分子。充分性实验中,向正常小鼠丘脑 VPL 直接注射重组 SPP1 蛋白,小鼠即可出现机械痛觉超敏,证明 SPP1 足够诱发疼痛表型。
必要性层面,研究采用多重手段进行验证:丘脑局部注射 SPP1 中和抗体阻断胞外 SPP1 功能,可以缓解脑出血造成的痛敏;全身 Spp1 敲除小鼠在发生丘脑出血之后,几乎不会发展出机械痛觉超敏;使用 AAV - CRISPR 在丘脑局部敲除 Spp1,同样能够减轻疼痛表型;小胶质特异性敲除 Spp1,也可以抑制痛觉超敏,同时纠正病灶周边神经元的异常高兴奋性。实验同时排除 Igf1、Ifi27l2a 等其他上调基因的致痛作用,说明疼痛表型变化是 SPP1 特异性介导。另外,Spp1 敲除小鼠和对照组小鼠的脑出血病灶体积没有差异,说明 SPP1 介导疼痛,并不是通过改变脑组织损伤的严重程度实现。
在下游机制方面,对比野生型与 Spp1 敲除小鼠的小胶质转录组发现,Spp1 缺失不会全面抑制炎症基因,而是选择性下调 CCL2、CCL5、CCL12 等 CC 趋化因子。使用工具分子抑制 CC 趋化因子信号,能够缓解机械痛敏,降低丘脑神经元过度兴奋。上述结果说明 SPP1 通过塑造富含 CC 趋化因子的促伤害性局部微环境,进而介导中枢卒中后疼痛。
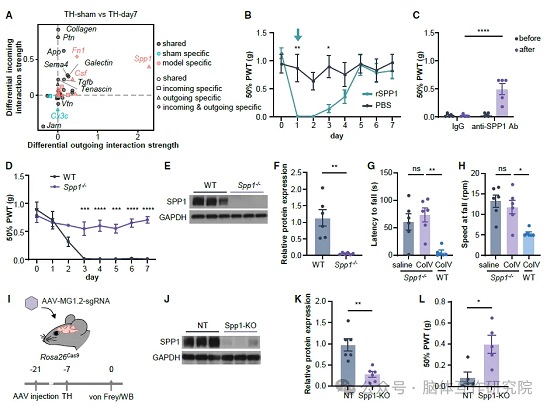
图 3 用来验证 SPP1 在 CPSP 当中的功能地位。
2.4 上游嘌呤能 ATPP2X7 信号通路启动 SPP1 表达
脑出血发生之后细胞裂解会大量释放 ATP,ATP 作为损伤警报分子作用于小胶质。丘脑局部注射 ATP 稳定类似物 ATPγS,可以上调丘脑 SPP1 蛋白表达,并且诱导小鼠机械痛觉超敏;但在 Spp1 敲除小鼠当中,ATPγS 无法诱发痛敏,说明 SPP1 处于 ATP 信号的下游。
进一步确认介导该效应的受体为 P2X7。给予 P2X7 受体抑制剂 BBG 之后,丘脑出血诱导的 SPP1 蛋白上调被抑制,小鼠的机械痛觉超敏、运动功能损伤均得到改善。预先耗竭小胶质,同样可以消除 ATPγS 带来的 SPP1 升高和疼痛。
结果说明:脑出血释放的 ATP,通过小胶质 P2X7 受体启动 SPP1 的表达,是整个病理通路的上游触发开关。
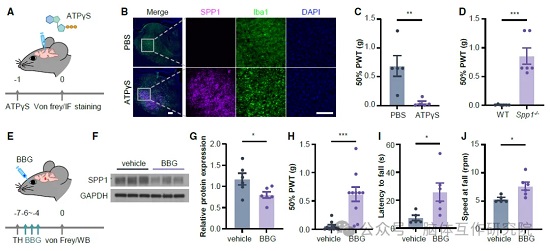
图 4 聚焦 SPP1 的上游启动信号。
2.5 SPP1ITGB1 自分泌正反馈环路专门维持慢性疼痛状态
细胞通讯分析提示,SPP1 主要作用于小胶质自身表面的 ITGB1(整合素 β1)受体,形成小胶质到小胶质的自分泌信号环路。
药理学实验显示,整合素拮抗剂干预可以减轻丘脑出血后的机械痛敏,而整合素激动剂会加重痛觉超敏。构建小胶质特异性 Itgb1 条件敲除小鼠,丘脑出血之后,该小鼠的机械痛敏可以发生,但是疼痛无法长期维持,痛阈可以逐步恢复。为区分急性启动和慢性维持的功能差异,向 Itgb1 - cKO 小鼠丘脑注射重组 SPP1,小鼠能够出现短暂的机械痛敏,但是疼痛仅维持很短时间便消退。这一关键结果说明,ITGB1 并不参与疼痛的急性期启动,但是对于慢性疼痛的持续维持不可或缺。
分子检测结果显示,Itgb1 敲除之后,丘脑出血模型中小胶质 Spp1 的 mRNA 表达水平显著下降。证明 SPP1 激活 ITGB1 信号,反过来又维持小胶质自身 SPP1 的合成,构成自分泌正反馈环路,持续放大病理信号。研究同时对 SPP1 的其他候选受体 Cd44、Itgav 进行局部敲除,均无法改善疼痛表型,凸显 ITGB1 在该病理过程中的特异性。Itgb1 敲除同样可以削弱 CC 趋化因子的上调,把上游环路和下游趋化因子效应联系起来。
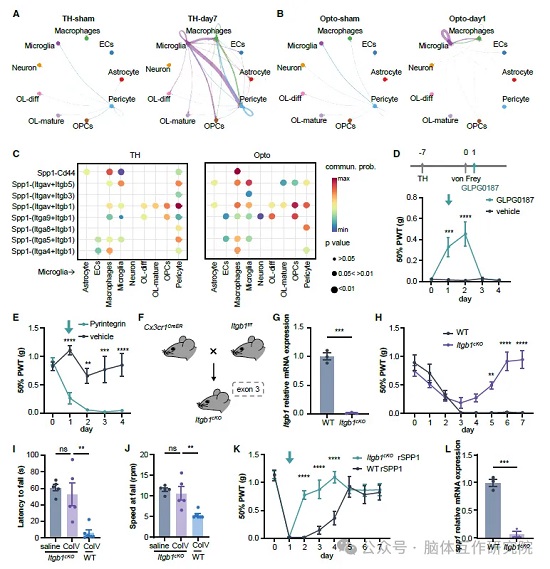
图 5 阐释全文最核心的自分泌反馈环路机制。
2.6 研究局限性
该研究主要采用胶原酶诱导丘脑出血模型,通路的普适性还需要自体血脑出血模型进一步验证;CC 趋化因子下游发挥效应的靶细胞、对应受体还未解析;实验全部基于小鼠开展,人与小鼠小胶质细胞存在物种差异,仍然需要临床样本验证 SPP1 与 CPSP 患者发病的相关性。
3.1 重新定义 SPP1 的生物学角色
过去 SPP1 仅被视作疾病相关小胶质细胞的状态标志物,本研究通过多层次遗传、药理实验,证实小胶质来源 SPP1 是急性脑损伤向慢性中枢卒中后疼痛转换的分子开关,它并非损伤的被动伴随产物,而是驱动慢性疼痛发生的核心效应分子。
3.2 发现 SPP1 - ITGB1 自分泌正反馈环路,区分疼痛启动与维持时相
本研究揭示小胶质内部 SPP1 - ITGB1 自分泌正反馈环路,把整个通路划分为两个功能阶段:ATP - P2X7 信号负责急性期启动 SPP1 表达,开启疼痛;而 SPP1 - ITGB1 反馈环路专门负责锁住病理状态,维持慢性持续性疼痛。二者功能相互独立。
3.3 解释临床广谱抗炎药物疗效不佳的内在机制
SPP1 并不会触发全面的炎症风暴,而是特异性诱导 CC 趋化因子网络,塑造促伤害微环境。这就解释了临床上广谱抗炎药物对于 CPSP 治疗效果有限的原因,为后续药物开发指明方向,应当靶向特异性信号轴,而非笼统抑制全部炎症。
3.4 提出延后可干预的治疗窗口
因为 SPP1 - ITGB1 环路的功能集中在疼痛维持阶段,药物干预不需要严格限定在损伤发生的极早期,即便慢性疼痛表型已经建立,靶向该环路依然具备干预潜力;同时可以保留 SPP1 其他受体介导的组织修复功能,减少治疗带来的副作用风险。
4.1 区分分子 “标志物” 与 “功能驱动分子”
在中枢神经系统损伤当中,活化胶质细胞会出现大量基因上调,但上调不等于致病。对于组学筛选得到的候选基因,不能直接默认其具备致病功能,需要结合药理、多种基因编辑手段区分哪些仅仅是细胞状态改变的标记,哪些是真正介导病理表型的效应分子。
4.2 重视病理过程 “启动阶段” 与 “维持阶段” 的功能分离
同一个病理通路内部不同分子承担不同分工,部分分子只负责启动损伤反应,而反馈环路负责维持慢性病理稳态。针对慢性疾病,如果只干预启动阶段的信号,很难逆转已经建立的病理表型,靶向维持环路会更贴合慢性期治疗的现实需求。
4.3 跳出 “泛炎症” 固有思维,关注局部特异性微环境
神经病理性疼痛不一定来源于大规模的炎症风暴,可由一套特定趋化因子网络介导。神经炎症相关疾病的新药研发,应当跳出广谱抗炎的传统思路,聚焦细胞之间特异性的配体受体信号轴。
4.4 多模型互相佐证,正视动物模型固有限制
本研究同时使用损伤模型与无损伤光遗传激活模型,两套体系互相印证,排除组织坏死带来的混杂变量。同时也要客观看待动物模型的局限,单一模型得到的通路结论,需要多种疾病动物模型、后续临床样本加以验证,不能直接外推到人体。
4.5 同一分子功能具有高度微环境依赖性
SPP1 在缺血性卒中、蛛网膜下腔出血的研究报道中发挥组织修复保护作用,但在丘脑出血的微环境之下,SPP1 介导疼痛损伤。提示同一蛋白的功能会随着损伤类型、细胞表面受体组合、局部微环境发生改变,不能简单照搬其他疾病体系下的功能结论。
参考文献:
Dai R, Wu W, Zhou X, et al. A microglial SPP1ITGB1 feedback loop sustains thalamic hyperexcitability and poststroke pain. Neuron. 2026. doi:10.1016/j.neuron.2026.08.028
作者介绍:
罗敏敏,神经生物学家,博士生导师,特聘研究员。北京脑科学与类脑研究所所长。
研究方向:奖赏和惩罚的神经环路机制及其相关疾病。
-END-
想了解更多内容,获取相关咨询请联系
电 话:+86-0731-84428665
伍经理:+86-180 7516 6076
工程师:+86-180 7311 8029
邮 箱:consentcs@163.com