雌激素重编程STING信号驱动NETs屏蔽肿瘤抗原的研究
南模生物为该研究提供了Kras-LSL-G12D(目录号:NM-KI-190003)、Trp53-LSL-R270H(目录号:NM-KI-200186)小鼠模型,并定制了Cldn18.2-flox小鼠模型。
紧密连接蛋白Claudin-18的剪接变体2(Claudin-18 isoform 2,CLDN18.2)正常情况下主要局限于胃黏膜上皮细胞,但在胃癌、胰腺癌、食管癌、卵巢癌和肺癌等多种恶性肿瘤中异位高表达。其正常组织分布局限、在肿瘤中异位表达并定位于细胞表面,使CLDN18.2成为抗体类药物研发中受到关注的靶点之一。多个CLDN18.2靶向ADC在若干癌种的早期临床研究中显示出抗肿瘤活性与可控的安全性,但临床响应仍存在异质性,决定疗效差异的生物学因素尚未得到充分探索。
性别是影响肿瘤行为与治疗结局的重要生物学变量。已有证据表明,由遗传、激素、免疫和表观遗传因素塑造的性别差异可影响肿瘤生物学与治疗响应,免疫检查点抑制剂(immune checkpoint blockade,ICB)的疗效与毒性已观察到性别特异性差异。新近的临床观察提示,这一现象可能并不局限于ICB:例如EV-301试验的亚组分析提示,NECTIN-4靶向ADC恩弗妥单抗维多汀(enfortumab vedotin)在男性患者中的生存获益较女性更明显;而包括PanaMa和FIRE-3在内的转移性结直肠癌试验分析提示,抗EGFR单抗在女性患者中的获益一致性较低。然而,CLDN18.2靶向ADC的临床试验仍处于早期阶段,尚未纳入预设的性别分层分析,CLDN18.2-ADC治疗响应中是否存在性别二态性仍不清楚。此研究通过建立人源化PDX生物样本库,对55例CLDN18.2+胰腺导管腺癌(pancreatic ductal adenocarcinoma,PDAC)样本开展“类II期临床前试验”,考察CLDN18.2-ADC的治疗疗效及治疗响应中的性别二态性。
1类II期临床前试验揭示CLDN18.2-ADC疗效的性别二态性
为评估未经治疗肿瘤对CLDN18.2-ADC的固有敏感性,研究团队建立了hCD34+人源化PDX“类II期临床前试验”,纳入55例CLDN18.2+(免疫组化2+/3+且阳性细胞比例大于40%)的PDAC PDX模型,每个模型分别移植到1只雄性和1只雌性hCD34+人源化受体小鼠中(图1A)。按改良RECIST(mRECIST)标准评估,110只小鼠整体响应良好,其中mCR 8例(7.3%)、mPR 58例(52.7%)、mSD 36例(32.7%)、mPD 8例(7.3%),客观缓解率(objective response rate,ORR)为60%(图1B)。
研究团队随后分析影响治疗响应的因素,发现受体性别是CLDN18.2-ADC响应的显著决定因素,其他临床病理变量与治疗结局无明显关联(图1C);多因素广义估计方程回归分析进一步确认受体性别是ADC响应的独立决定因素。雄性受体在ADC治疗后的肿瘤退缩程度显著大于雌性受体(图1D),ORR也显著更高(80.0%比40.0%,p<0.0001);流式分析显示,雄性宿主中肿瘤细胞的凋亡率更高(图1E、1F)。
研究团队进一步在多种动物模型中验证这一性别二态性。在自发性PDAC模型KPC小鼠(Kras-LSL-G12D;Trp53-LSL-R270H; Pdx1-Cre)中,雄性小鼠的肿瘤退缩更明显、肿瘤抑制率更高(图1H、1I),Ki67阳性肿瘤细胞比例下降(图1J、1K),凋亡水平升高(图1L、1M),并转化为更明显的总生存获益(图1N);皮下胃癌移植瘤模型中,雄性小鼠的响应同样更强(图1O–1S)。这些结果提示,CLDN18.2-ADC的疗效在CLDN18.2+ PDAC与胃癌小鼠模型中呈现性别二态性,雌性小鼠的治疗获益相对减弱。
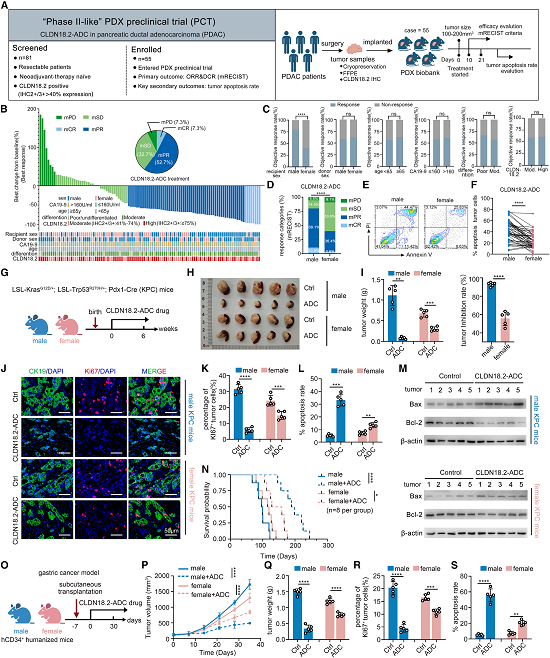
图1. 配对的“类II期”PDX临床前试验揭示对CLDN18.2-ADC的性别二态性响应
2雌激素而非雄激素驱动对CLDN18.2-ADC的性别二态性耐药
性激素在雌雄之间存在明显差异,并可塑造宿主微环境。在交叉性别移植实验中,研究团队观察到宿主性别而非供体肿瘤性别决定治疗响应的差异,据此进一步考察雌激素或雄激素的作用。研究团队在肿瘤移植前14天切除成年小鼠的性腺并检测外周血激素水平(图2A、2B),随后在荷瘤后给予CLDN18.2-ADC(图2C)。结果显示,雄性小鼠去势(orchiectomy,ORX)对ADC疗效影响很小,去势与假手术雄性小鼠中均可见明显的肿瘤退缩(图2D、2E)、凋亡增加(图2F)与生存延长(图2G);与之相反,卵巢切除(ovariectomy,OVX)雌性小鼠对ADC的敏感性明显提高,肿瘤体积显著减小、肿瘤抑制率升高(图2H、2I)、凋亡增加(图2J)、生存改善(图2K),提示雌激素是CLDN18.2-ADC耐药的重要介导因素。
为明确17β-雌二醇(17β-estradiol,E2)这一雌激素主要生物活性形式的作用,研究团队在OVX雌性小鼠肿瘤移植前2周皮下植入E2缓释胶囊(图2L),并通过血清E2定量确认激素水平得到恢复(图2M)。E2回补在OVX小鼠中重新建立了对CLDN18.2-ADC的治疗耐药,表现为肿瘤持续生长(图2N–2S)、凋亡减少(图2T)以及生存获益降低(图2U)。这些结果表明,是雌激素而非雄激素主导了CLDN18.2靶向ADC治疗的性别二态性响应。
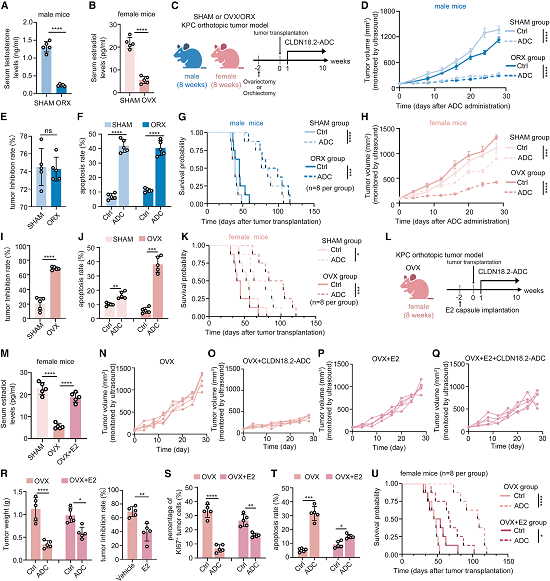
图2. 雌激素而非雄激素驱动对CLDN18.2-ADC的性别二态性耐药
3雌激素诱导中性粒细胞依赖的CLDN18.2-ADC耐药
为解析雌激素诱导性别二态性的机制,研究团队首先考察了雌激素对肿瘤细胞的直接影响,发现雌激素既不改变CLDN18.2的表达,也不影响肿瘤细胞的内化过程,提示其驱动的耐药可能来自肿瘤细胞之外。考虑到免疫微环境对ADC疗效的影响,研究团队对Sham与OVX雌性小鼠KPC类器官荷瘤模型的CD45+免疫细胞进行了单细胞RNA测序(图3A),共获得41,260个高质量转录组,聚类为7个主要免疫谱系,包括T细胞、巨噬细胞、自然杀伤细胞、中性粒细胞、树突状细胞、肥大细胞和B细胞(图3B、3C)。雌激素去除后,T细胞与中性粒细胞的丰度发生变化(图3D)。鉴于在T细胞缺陷模型中性别二态性响应依然可见,研究团队将关注点转向中性粒细胞,其丰度在雌激素去除后明显下降(图3E、3F);流式分析验证了卵巢切除后中性粒细胞丰度的显著降低(图3G、3H),而E2回补可恢复OVX小鼠瘤内中性粒细胞的聚集(图3I–3K)。
为考察中性粒细胞的因果作用,研究团队采用抗Ly6G抗体在荷瘤小鼠中清除中性粒细胞(图3L、3M),清除后CLDN18.2-ADC的疗效显著恢复,表现为肿瘤重量降低(图3N)、凋亡增加(图3O)和生存延长(图3P)。研究团队还将骨髓来源中性粒细胞(bone marrow-derived neutrophils,BM.Neu)过继转移至中性粒细胞谱系被遗传学去除的S100a8-DTA雌性小鼠(图3Q),转移明显削弱了ADC在雌性小鼠中的疗效,表现为肿瘤负荷升高(图3R、3S)、凋亡减少(图3U)、Ki67阳性细胞增多(图3V、3W)以及生存缩短(图3X)。这些结果提示,雌激素是通过改变中性粒细胞的功能状态来诱导ADC耐药,而非仅改变其数量。
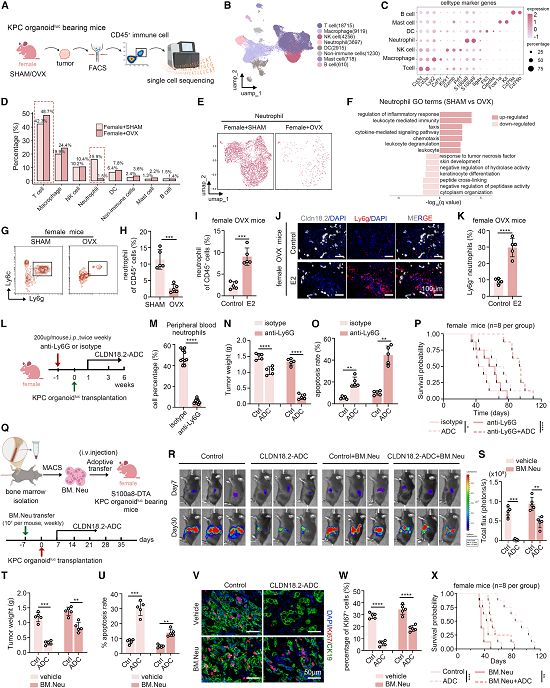
图3. 雌激素诱导中性粒细胞依赖的CLDN18.2-ADC耐药
4雌激素诱导的NET形成限制肿瘤抗原可及性并削弱ADC细胞毒性
研究团队进而分析中性粒细胞的功能状态。对Sham与OVX雌性小鼠瘤内中性粒细胞的RNA测序分析显示,氧化应激与脱颗粒相关基因的表达出现改变(图4A)。来自Sham小鼠的中性粒细胞表现出衰老相关表型,其活性氧(reactive oxygen species,ROS)水平明显高于OVX小鼠(图4B、4C)。由于ROS升高是NET形成的已知驱动因素,研究团队进一步检测NETosis,发现Sham小鼠中发生NETosis的中性粒细胞比例高于OVX小鼠(图4D–4F)。
中性粒细胞胞外陷阱(NETs)由解聚的染色质、组蛋白和颗粒蛋白组成,可包裹肿瘤细胞,但其是否参与ADC耐药尚不清楚。研究团队据此提出假设:NETs可能限制ADC接近肿瘤细胞表面抗原。为验证这一假设,研究团队将CLDN18.2+肿瘤细胞与中性粒细胞在雌激素刺激下共培养(图4G)。扫描电镜显示,雌激素处理后大量NET结构覆盖于肿瘤细胞表面(图4H);免疫金电镜进一步显示,NET覆盖的肿瘤细胞中ADC的积聚减少,提示ADC的进入与内化受到限制。研究团队将这一过程定义为“NET介导的功能性抗原屏蔽”(图4P)。
在共培养体系中加入CLDN18.2-ADC后,雌激素刺激下被NET覆盖的肿瘤细胞所受的细胞毒性降低(图4I、4J)。为直接观察NETs对ADC可及性的影响,研究团队制备了ATTO647标记的CLDN18.2-ADC用于体外与体内示踪(图4K)。共培养中,雌激素诱导的NET形成明显减少了ADC与肿瘤细胞表面的结合,标记的ADC更多滞留于NET结构内(图4L);体内成像显示,雌性Sham小鼠中ADC向肿瘤细胞的定位受损,而OVX小鼠中雌激素的去除恢复了ADC与肿瘤细胞抗原的结合(图4M–4O)。
为确定NETs是否为ADC耐药所必需,研究团队通过遗传学方法降低NET形成,构建了中性粒细胞谱系Padi4敲除小鼠(S100a8-Padi4Δ)(图4Q)。与野生型相比,S100a8-Padi4Δ雌性小鼠的NET形成明显减少(图4R、4S),对CLDN18.2-ADC治疗的响应改善,表现为肿瘤细胞凋亡增加(图4T)、肿瘤负荷降低(图4U、4V)和生存延长(图4W)。这些结果表明,NET形成是性别偏倚ADC耐药的功能性必需环节,抑制其形成可恢复对ADC治疗的敏感性。
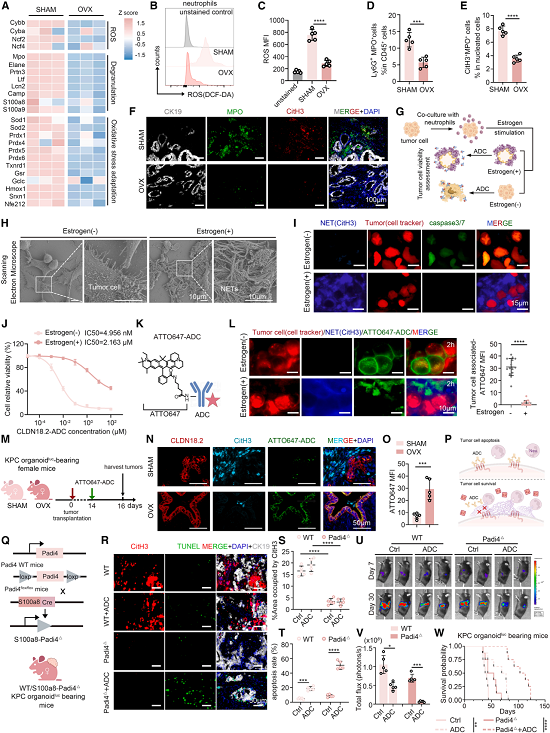
图4. 雌激素诱导的NET形成限制肿瘤抗原可及性并削弱ADC细胞毒性
5雌激素将肿瘤细胞STING信号重定向至NF-κB以促进NET形成
为探究雌激素如何驱动NET在肿瘤微环境中积累,研究团队首先考察了其对中性粒细胞的直接影响。虽然雌激素在体外可经GPER1诱导离体中性粒细胞发生NETosis,但在相同雌激素条件下,肿瘤细胞与中性粒细胞共培养所诱导的NET形成多于中性粒细胞单独培养(图5A–5C);且雌激素处理的CLDN18.2+肿瘤细胞条件培养基比CLDN18.2−细胞条件培养基诱导更强的NET形成(图5D–5F),提示存在依赖CLDN18.2的肿瘤细胞程序。
转录组分析显示,CLDN18.2过表达细胞中I型干扰素通路富集、干扰素刺激基因广泛上调,并伴有STING磷酸化增加。药理抑制STING(SN-011)(图5G)可抑制由雌激素处理的CLDN18.2+肿瘤细胞所诱导的NET形成(图5H)与中性粒细胞迁移(图5I);在正交移植的KPC类器官中敲除STING同样明显减弱体内雌激素诱导的NET形成(图5J–5L)。这些结果提示,肿瘤细胞STING信号是雌激素诱导NET形成的重要介导因素。
STING激活通过IRF3与NF-κB两条信号轴传导(图5M)。为区分哪条输出对NET形成是必需的,研究团队检测了雌激素处理后STING效应通路的激活情况,发现雌激素抑制CLDN18.2+肿瘤细胞中IRF3相关的干扰素响应,同时增强NF-κB的激活(图5N、5O)。抑制NF-κB而非TBK1/IRF3可抑制由雌激素处理的肿瘤细胞所诱导的NET形成(图5P–5T),并减少雌性小鼠瘤内的NET积累(图5U、5V)。这些结果表明,雌激素使CLDN18.2+肿瘤细胞中的STING信号偏向NF-κB主导,从而促进NET形成和治疗耐药。
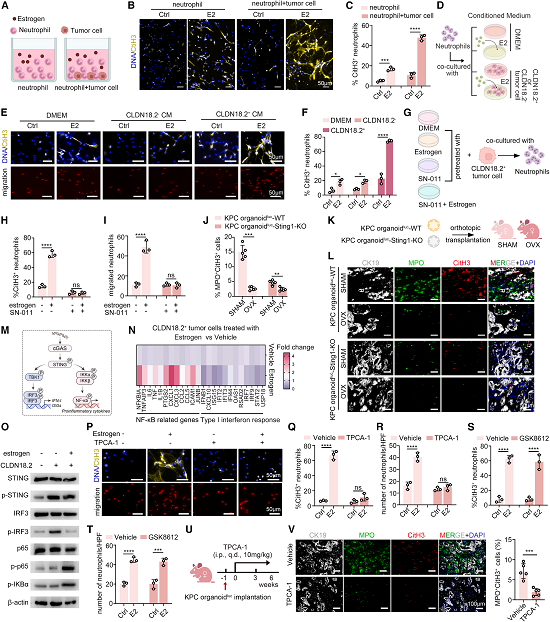
图5. 雌激素将肿瘤细胞STING信号重定向至NF-κB以促进NET形成
6 雌激素重编程肿瘤细胞分泌的CXCL1促进CXCR2依赖的NET形成
为鉴定负责中性粒细胞募集与NET形成的肿瘤来源因子,研究团队分析了雌激素处理的CLDN18.2+肿瘤细胞的分泌组(图6A)。用3 kDa截留滤膜对条件培养基进行分离后发现,富蛋白组分而非富代谢物组分可促进中性粒细胞趋化(图6B)与NET形成(图6C);热变性处理后上述效应消失(图6D、6E),表明起作用的是一类蛋白介质。将分泌组蛋白质组学分析与NF-κB靶基因分析整合,研究团队鉴定出8个候选介质(图6F、6G),其中CXCL1因是公认的中性粒细胞趋化因子而被优先关注。
雌激素明显增加CLDN18.2+肿瘤细胞中CXCL1的分泌(图6H),而中和CXCL1可减少由雌激素处理肿瘤细胞条件培养基诱导的中性粒细胞迁移(图6I)、NET形成(图6J)与ROS产生(图6K);抑制NF-κB信号则可抑制CXCL1的分泌(图6L),支持CXCL1是STING-NF-κB重编程的下游效应因子。
进一步分析显示,血清CXCL1在雌性KPC类器官荷瘤小鼠和PDAC患者样本中较雄性上调,在女性CLDN18.2+ PDAC患者中尤为明显(图6M、6N);肿瘤CXCL1水平与瘤内中性粒细胞浸润呈正相关(图6O);多重免疫荧光显示,女性CLDN18.2+ PDAC患者中NET形成增加、CXCL1水平升高(图6P)。在类器官-中性粒细胞共培养体系中,CXCL1中和抗体增强了ADC的肿瘤杀伤作用(图6Q、6R);在体内,CXCL1中和明显减少NET形成(图6T),并使雌性荷瘤小鼠对ADC更敏感,表现为肿瘤重量降低(图6U)、凋亡增加(图6V)与生存延长(图6W)。中性粒细胞谱系CXCR2敲除小鼠(S100a8-Cxcr2Δ)(图6X)在雌性宿主中的NET形成明显减少(图6Y),由此确立CXCL1-CXCR2轴是雌激素驱动NET诱导的重要介导通路。
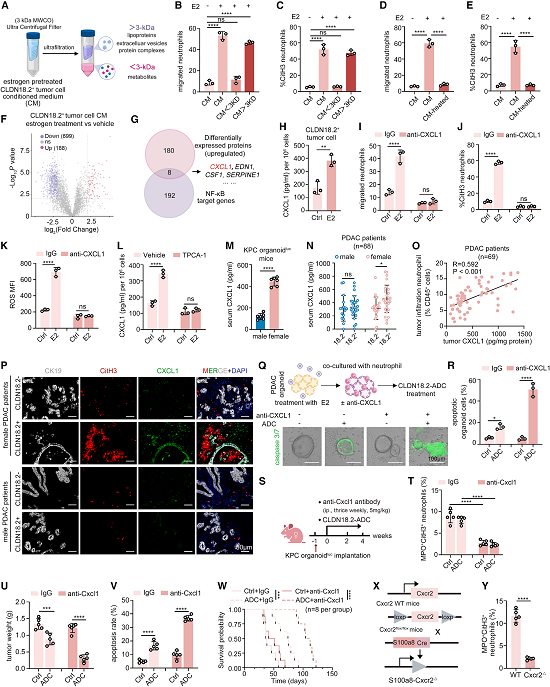
图6. 雌激素重编程肿瘤细胞分泌的CXCL1促进CXCR2依赖的NET形成
7 西维来司他抑制NET可增强胰腺癌与胃癌模型中CLDN18.2-ADC的疗效
鉴于NETs在雌性肿瘤中参与介导CLDN18.2-ADC耐药,研究团队推测抑制NET可恢复ADC疗效。西维来司他(sivelestat)是一种选择性中性粒细胞弹性蛋白酶抑制剂,可抑制NET形成,并已有临床安全性数据支持,研究团队据此将其与CLDN18.2-ADC联合评估。体外实验显示,西维来司他可抑制雌激素介导的NET形成(图7A、7B);共培养实验进一步显示,在存在中性粒细胞与雌激素的条件下,西维来司他增强了CLDN18.2-ADC对CLDN18.2+肿瘤细胞的细胞毒性(图7C、7D)。
为评估抑制NET能否在体内恢复ADC疗效,研究团队对雌性KPC小鼠给予皮下西维来司他联合静脉CLDN18.2-ADC治疗(图7E)。西维来司他明显减少瘤内NET形成(图7G、7H)、恢复ADC对肿瘤细胞表面CLDN18.2的可及性(图7J)、增强肿瘤细胞凋亡(图7I)并降低肿瘤增殖(图7K、7L),且不影响体重(图7F);与单药相比,联合治疗组出现肿瘤退缩(图7M)和生存延长(图7N)。该联合方案的疗效在胃癌模型中同样得到验证(图7O–7S)。这些结果支持,西维来司他可增强CLDN18.2靶向ADC在胰腺癌与胃癌模型中的抗肿瘤活性。
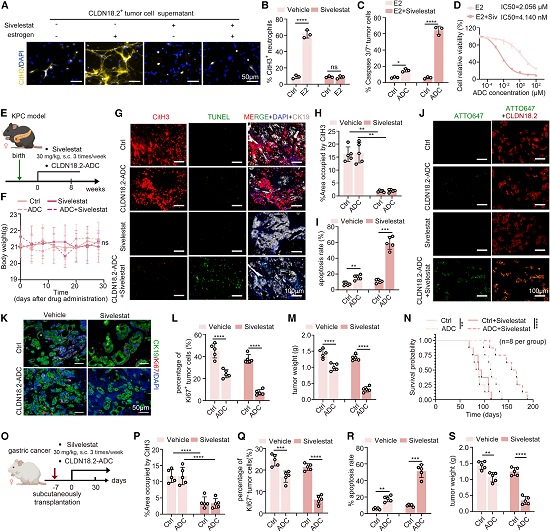
图7. 西维来司他介导的NET抑制增强胰腺癌与胃癌模型中CLDN18.2-ADC的疗效
此研究通过“类II期”临床前PDX试验结合多种体内外模型,观察到CLDN18.2靶向ADC疗效的性别二态性:在抗原表达水平相当的情况下,雌性宿主的治疗响应相对减弱。机制上,雌激素经肿瘤细胞膜受体GPER1上调TRAF6的表达,使肿瘤内在的STING信号由IRF3-干扰素轴转向NF-κB轴,驱动CXCL1分泌、中性粒细胞募集与NET形成;NETs随后在肿瘤细胞表面构筑“功能性抗原屏蔽”,限制抗体与细胞表面抗原的结合,从而在抗原表达之外削弱ADC的杀伤作用。针对这一机制,使用西维来司他抑制NET可恢复雌性小鼠的ADC疗效;这些发现为理解抗体类药物的性别偏倚耐药提供了机制线索,也提示将性别因素纳入ADC临床研究设计与治疗策略的意义。
相关阅读
加速ADC新药研发:专业模型+药效验证一站式服务平台
做ADC项目,这些模型和服务可能正是你需要的!
如何选择合适的肿瘤模型?
关于我们
上海南方模式生物科技股份有限公司(Shanghai Model Organisms Center, Inc.,简称"南模生物"),成立于2000年9月,是一家上交所科创板上市高科技生物公司(股票代码:688265),始终以编辑基因、解码生命为己任,专注于模式生物领域,打造了以基因修饰动物模型研发为核心,涵盖多物种模型构建、饲养繁育、表型分析、药物临床前评价等多个技术平台,致力于为全球高校、科研院所、制药企业等客户提供全方位、一体化的基因修饰动物模型产品解决方案。
阅读原文