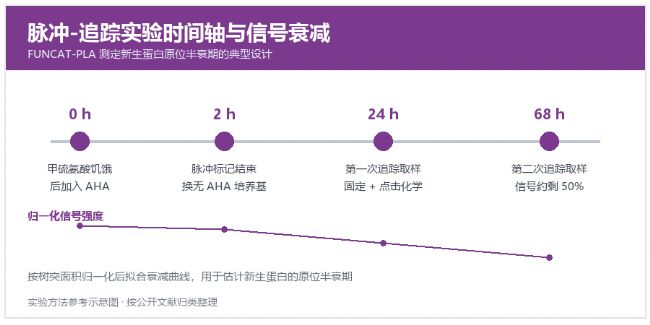
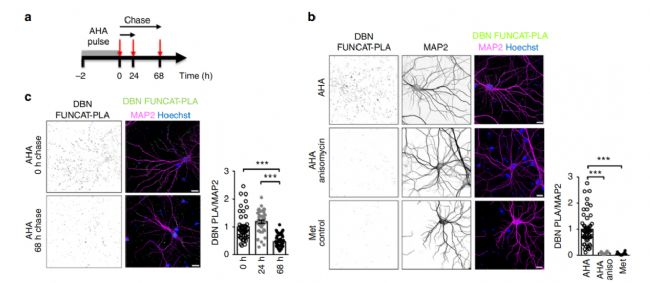
原代海马神经元培养到 17~24 天,先换不含甲硫氨酸的培养基做短时饥饿,再加入 4 mM 叠氮高丙氨酸(AHA)脉冲 2 小时,让这段时间新合成的蛋白掺入带叠氮基团的氨基酸类似物。
两个对照决定了这套标记是否可信:AHA 标记期间加入蛋白质合成抑制剂,点状信号应几乎消失;用天然甲硫氨酸替代 AHA 做同样流程,同样不应出现信号。少了这两个对照,无法排除点击化学反应或抗体本身带来的背景。
样本用含 4% 多聚甲醛与 4% 蔗糖的缓冲液固定 20 分钟,再用 0.5% Triton X-100 透化;随后通过生物素-炔烃的点击化学反应,把生物素标签共价接到含 AHA 的新生蛋白上。
接下来用抗生物素抗体与目标蛋白抗体共同孵育,再加对应探针完成连接与滚环扩增。只有「新生」标签与目标蛋白同时被识别且空间邻近,才会形成可计数的信号点——这正是该方法能把新生蛋白与既有蛋白区分开的原因。
三、追踪与成像:把时间轴转成可拟合的数据
脉冲结束后换成不含 AHA 的培养基,分别在 0、24、68 小时取样固定,构成脉冲-追踪时间轴。复染用树突标志物与核染,共聚焦采集 Z-stack,避免单层焦面漏掉树突棘附近的点。
计数时只统计与树突信号重叠或距离小于 1 µm 的点,再除以树突标志物阳性的面积做归一化,消除细胞大小与树突密度差异。把各时间点的归一化信号拟合衰减曲线,就能估计该蛋白在原位的半衰期;公开研究中神经元肌动蛋白结合蛋白在 68 小时追踪后约剩一半初始信号。
需要固定记录的参数包括:细胞培养天数、饥饿时长、AHA 浓度与脉冲时间、固定液配方与时长、透化剂浓度、点击反应体系、双一抗的宿主与稀释比、Z-stack 步长、点状信号阈值与距离判定、以及归一化分母。任意一项在组间漂移,衰减曲线就失去意义。
这套方法的价值在于保留空间信息:同一个神经元里,树突远端与胞体的新生蛋白周转速度可以分开看。局限也明显——通量低、依赖高质量抗体、对培养条件敏感,更适合作为群体生化结果的空间维度补充。
常见问题
问:为什么一定要按树突面积归一化?
不同神经元的树突复杂度差别很大,直接比较信号点总数会把「树突更大」误读成「合成更多」。
问:AHA 脉冲时间能随意延长吗?
不建议。脉冲过长会让「新生」窗口变宽,后续追踪的起点变模糊,半衰期拟合会系统性偏高。
问:这套流程能用于脑切片或活体组织吗?
代谢标记需要把氨基酸类似物有效递送到细胞,组织或活体样本需重新验证掺入效率与固定条件,不能直接套用培养神经元的参数。