激光散斑血流成像系统在揭示糖尿病血管反应性变化新机制中的应用
L型CaV1.2通道在细胞兴奋、增殖、基因表达和肌肉收缩中起关键作用。CaV1.2通道的一个基本特性是它们内在的功能耦合能力,例如“合作门控”(cooperative gating)。CaV1.2的这种协同作用导致Ca2+内流放大,这种门控模式能够调节癌细胞、心肌细胞、神经元和动脉肌细胞的功能。在动脉肌细胞中,大约50%的Ca2+内流依赖于CaV1.2的合作门控,这对于动脉功能至关重要,因为Ca2+通过CaV1.2流入,将膜电位的变化与动脉肌细胞收缩耦合,从而影响动脉的直径、血流量和血压。然而,CaV1.2的合作门控是如何被调节的,目前的研究仍然知之甚少。
2022年12月2日,UC Davis分校的Manuel F. Navedo 和Madeline Nieves-Cintrón团队在Circulation Research杂志上发表题为“Spatiotemporal Control of Vascular CaV1.2 by α1C S1928 Phosphorylation”的研究论文。该研究证实,PKA依赖的pS1928(CaV1.2 α1C亚基S1928位点磷酸化)作为一个关键起始步骤,促进了糖尿病高血糖期间血管α1C亚基的空间重组,形成“超簇”,从而增加CaV1.2的活性和合作门控,直接影响血管反应性。因此,作者提出α1C亚基的pS1928是血管CaV1.2功能和血管反应性的变阻器,也是糖尿病高血糖期间血管并发症的危险因素。这一结果可能为开发纠正糖尿病高血糖时期CaV1.2和动脉功能的治疗方法奠定了基础。
CaV1.2通道是由成孔的α1C亚基和辅助的β、α2δ亚基组成。先前的研究表明,α1C亚基长羧基端是CaV1.2合作门控所必需的,两个或多个相邻α1C亚基羧基端之间的相互作用促进了CaV1.2合作门控。新的证据表明,蛋白激酶可以刺激CaV1.2的协同作用。α1C亚基可以形成有利于α1C亚基功能相互作用的簇,α1C亚基的磷酸化可能是诱导和促进α1C亚基聚集以及CaV1.2合作门控的关键起始步骤。最近的研究显示,高血糖(hyperglycemia, HG)和糖尿病引起的血管CaV1.2通道活性增加依赖于S1928磷酸化的增强(pS1928)。尽管初步的研究表明HG和糖尿病可增加血管CaV1.2的合作门控,但pS1928是否会介导这种门控模式尚不清楚。阐明这其中的机制十分重要,因为它可以确定pS1928作为一个关键事件,可以通过α1C亚基的重新排布形成更大的簇来介导CaV1.2的合作门控,这可能是糖尿病高血糖等病理条件下血管功能改变的基础。
在该研究中,作者首先利用膜片钳技术检测了2型糖尿病患者动脉肌细胞的CaV1.2通道特性,结果显示,糖尿病患者动脉肌细胞内CaV1.2通道的活性和协同性增强。CaV1.2协同性增加意味着α1C亚基必须在物理上接近,为此作者利用超分辨率纳米显微镜对α1C亚基的空间排布进行了观察,结果观察到糖尿病人动脉肌细胞中质膜α1C亚基重组成更大的簇,这可能是CaV1.2通道活性和协同性增强的基础。考虑到已有研究认为糖尿病高血糖引起的血管CaV1.2通道活性增加依赖于pS1928,作者进一步探讨了pS1928在高糖诱导的动脉肌细胞CaV1.2合作门控中的作用。利用野生型或者S1928A小鼠(1928丝氨酸位点突变为丙氨酸以防止其磷酸化)的动脉肌细胞,作者证实:高糖刺激引起的CaV1.2合作门控需要PKA依赖的pS1928,此外,高糖刺激能够诱导P2Y11/PKA依赖的pS1928,并导致α1C亚基的寡聚化/聚集增加。这些数据支持以下假设:高糖刺激诱导的pS1928能够促进动脉肌细胞α1C亚基空间重排成更大的簇,从而使动脉肌细胞CaV1.2的协同作用增强。
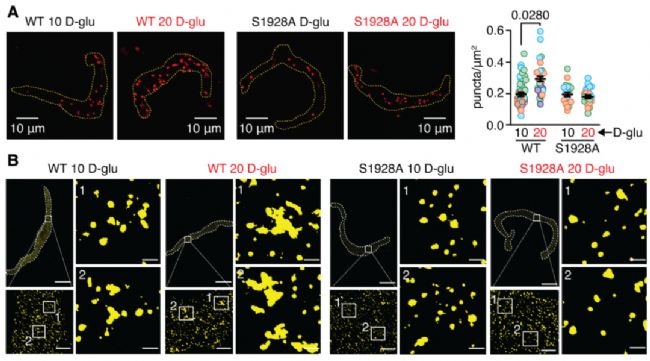
图1. pS1928介导了高糖诱导的动脉肌细胞α1C聚集增加
随后,作者进一步探讨了高糖环境下ps1928介导α1C聚集和CaV1.2协同性增加的生理效应。利用钙离子指示剂,作者观察到pS1928是高糖诱导的胞内Ca2+增加所必需的,并导致了动脉肌细胞的收缩。为了证实高糖环境下pS1928在体内的生理作用,作者利用激光散斑成像技术测量了麻醉小鼠的脑动脉肌源性张力和血流量(作者采用了RWD激光散斑血流成像系统)。在野生型小鼠中,用20 mmol/L D -葡萄糖向颅窗灌注导致动脉直径减小,进而转化为肌源性张力增加和血流量减少,而S1928A小鼠未见此情况。这些结果表明,高糖诱导的脑动脉肌源性张力和血流的改变需要依赖pS1928。考虑到高血糖与糖尿病的联系,作者利用链脲佐菌素(streptozotocin, STZ)诱导的1型糖尿病小鼠模型进一步验证了动脉肌细胞CaV1.2的结构和功能重塑是否需要pS1928。结果表明,糖尿病高血糖促进了ps1928依赖的动脉肌细胞内α1C的聚集,以及CaV1.2通道活性和协同性的增加。利用激光散斑血流成像技术,作者观察到,STZ诱导的野生型糖尿病小鼠脑血管的肌源性张力增加,血流量减少,而STZ诱导的S1928A小鼠脑血管的肌源性张力和血流量则与对照组无明显差异。这些结果表明,糖尿病高血糖诱导小鼠血管收缩张力和血流量的改变需要依赖pS1928。
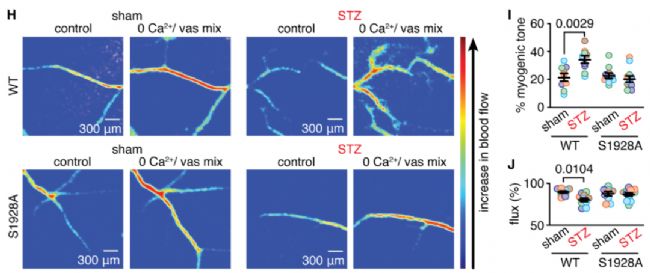
图2.糖尿病引起的动脉收缩张力增加和血流量减少需要依赖pS1928
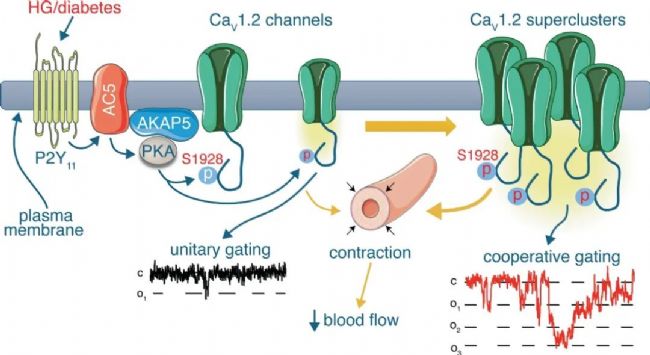
图3.糖尿病高血糖时期CaV1.2合作门控的调节机制和血管反应变化示意图
该研究结果可为开发纠正糖尿病高血糖期间CaV1.2和动脉功能的治疗方法奠定基础。本研究采用了膜片钳电生理学、超分辨率纳米显微镜、邻近结扎测定、钙成像和激光散斑血流成像等技术。瑞沃德深耕生命科学研究领域20年,一直致力于为客户提供可信赖的解决方案和服务。在该研究中,研究人员采用了瑞沃德激光散斑血流成像系统,为实验的顺利开展提供了助力。此外,瑞沃德还可提供该研究所涉及的脑立体定位手术、化学遗传学、在体钙成像、免疫组化以及行为学评估等实验的完整解决方案。
论文原文链接:https://www.ahajournals.org/doi/suppl/10.1161/CIRCRESAHA.122.321479