总蛋白归一化在跨脑区与磷酸化Western Blot中的应用
2026年7月,多伦多病童医院Scherer团队在Nature发表了一项关于自闭症的研究(Bradley et al., Nature 655: 418–428)。抛开生物学结论不谈,单看这篇论文的Western Blot方法学,有三处做法值得逐条拆解:
- 两级归一化——每条泳道先归一化至本泳道总蛋白,再按每块胶上的内部批次对照泳道二次校正
- 荧光多重检测——磷酸化抗体与总蛋白抗体同膜同泳道,完全不做剥离重探
- 正交验证质谱——Western Blot与TMT标记质谱建立在同源的定量基础上
这项研究的实验设计,同时踩中了三个让传统Western内参失效的场景。
这项研究在做什么
团队发现X染色体上的一个长非编码RNA PTCHD1-AS是自闭症易感基因,并构建了两个独立的敲除小鼠品系。多组学分析指向背侧纹状体:经典型PKC家族(PKCα/β/γ)下调,SRC与GSK-3α/β磷酸化升高,星形胶质标志物GFAP 上调。
Western Blot在这里承担两个任务:
1.独立验证质谱结果——TMT标记质谱是“发现”,Western Blot是“确证”
2.建立区域特异性——证明这些改变发生在纹状体,而不发生在皮层
第二点是全文的关键论断之一。而恰恰是它,对归一化提出了最苛刻的要求。
场景一:跨脑区比较
纹状体和皮层是两种细胞组成截然不同的组织。神经元与胶质细胞的比例、神经元亚型构成、代谢活性都不一样,而GAPDH(糖酵解酶)、β-actin(细胞骨架)、tubulin的表达水平本就随组织类型变化。
当你要说“纹状体变了、皮层没变”时,如果两个区域的内参基线本身就不同,你比较的到底是目标蛋白的差异,还是内参的差异?
总蛋白归一化在这里的优势是结构性的:它不依赖任何特定蛋白在不同组织中的稳定性假设,只依赖“每条泳道上样了多少总蛋白”这个物理量。
看这项研究的实际数据。同一个GFAP抗体,纹状体与皮层各跑一套:
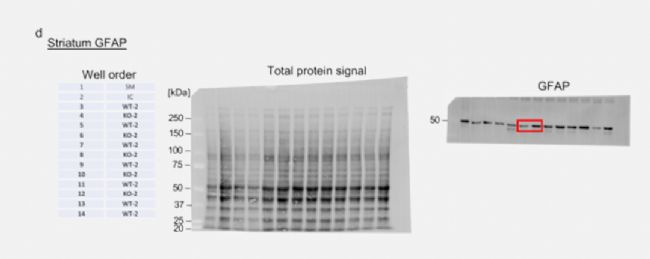
图 1 | 纹状体 GFAP:显著升高(p=0.041,N=9/7)
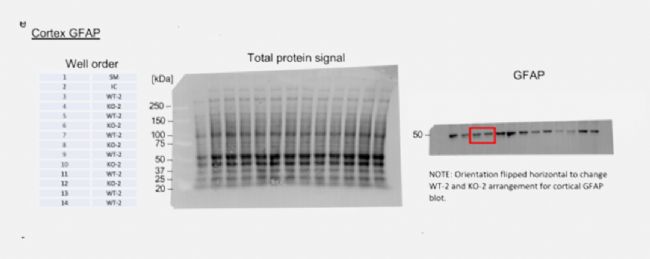
图 1 | 皮层 GFAP:同一抗体、同一批动物,无变化
注意中间那张总蛋白信号图——从250kDa到20kDa,整条泳道的全部蛋白都参与归一化。两个脑区的总蛋白条带图谱明显不同(纹状体在50kDa附近的富集带更重),这正是“跨脑区不能共用一个内参”的直观证据。而总蛋白归一化不受这种图谱差异影响,它只关心信号总量。
场景二:细胞组成本身发生了改变
这项研究观察到纹状体出现轻度反应性星形胶质增生—GFAP升高,星形胶质细胞异常表达MBP。
这意味着组织的细胞构成变了。一旦细胞构成改变,“管家蛋白”就不再是中性参照物:它的总量会随细胞比例一起漂移。
更微妙的是,GFAP本身就是被检测的目标之一。如果归一化所用的参照受到胶质状态影响,就会形成循环论证——你用一个受胶质增生影响的量,去校正另一个胶质增生的指标。
场景三:磷酸化与总蛋白的配对检测
研究的核心结论之一是:SRC磷酸化升高,但总SRC不变;GluN2A Y1246磷酸化升高,但总GluN2A不变;GSK-3α S21/GSK-3β S9磷酸化升高,但总GSK-3α/β不变。
请注意这句话的逻辑结构——它同时包含一个“变了”和一个“没变”。这类双向断言对归一化的要求远高于单向断言:
- 如果归一化引入了系统性偏差,你可能把不存在的磷酸化升高制造出来
- 也可能把真实的总蛋白变化抹平成“无差异”
- 而且这两种错误会朝同一方向叠加,让结论看起来格外“干净”
再看效应量:pSrc Y416的p=0.0363,pGluN2A p=0.0383,pGSK-3α S21 p=0.0328,pGSK-3β S9 p=0.0439,PKCα p=0.0383,GFAP p=0.041。全部落在0.03–0.05区间,样本量N=5–9。
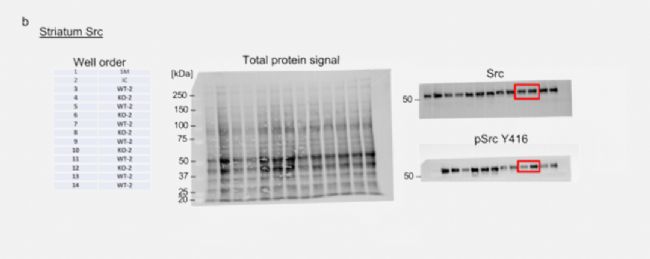
图 2 | 纹状体 Src(上)与 pSrc Y416(下)
——同一张膜、同一条泳道、同一个总蛋白参照
这张图值得多看两眼:总Src和磷酸化Src的信号来自同一次电泳、同一条泳道,共享同一个总蛋白归一化基准。分子层面的比值因此是内部自洽的,不需要跨膜或跨批次去拼接两个数字。
这是一组小效应量、小样本的数据。归一化带来的哪怕10%系统偏差,都足以把它们推过或拉回显著性边界。
他们的完整工作流
论文Methods中记录得相当细致:
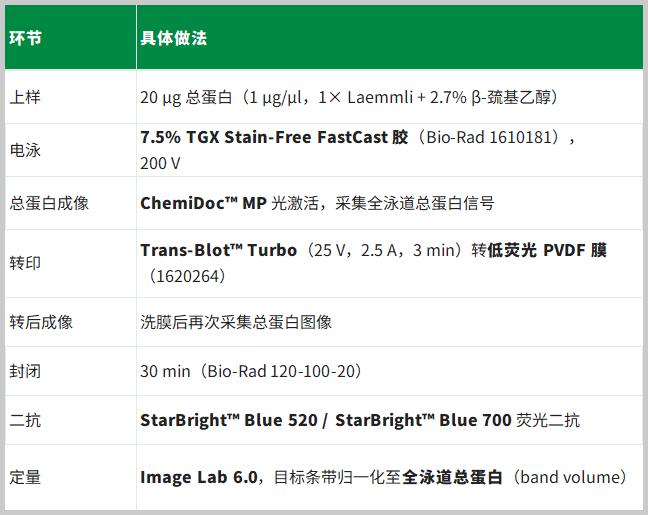
有两个设计值得单独拿出来讲。
进阶做法一:跨胶内部批次对照泳道
这项研究要检测近十种蛋白,每组N=5–9,必然涉及多块胶、多张膜。不同胶之间的可比性是一个独立于上样量的问题——转印效率、曝光条件、抗体批次都会引入胶间差异
他们的做法是:把所有样本的裂解液混合成一份“标准品”,在每一块胶上都跑一条这样的内部对照泳道。
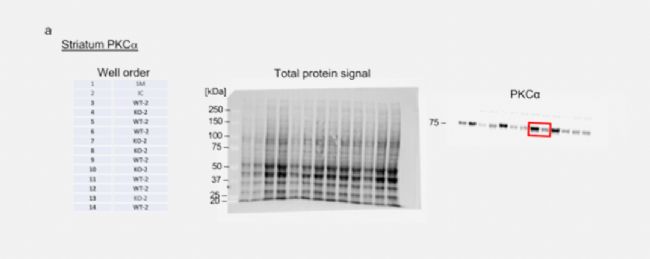
图 3 | 纹状体 PKCα。左侧上样顺序表:泳道 1 = SM(分子量标准),
泳道 2 = IC(混合裂解液内部对照),泳道 3 起为 WT-2 / KO-2 样本
左边那张上样顺序表就是这套设计的全部秘密——每块胶的第2号位固定留给IC泳道。
于是归一化变成两级:
3.每条泳道先归一化至本泳道的总蛋白(校正上样量)
4.再按本膜的内部对照泳道做二次校正(校正胶间/膜间差异)
这是总蛋白归一化的进阶用法。单靠内参蛋白很难做到这一点——因为你还得先假设内参在跨膜条件下的表现也是稳定的。
进阶做法二:荧光多重+Stain-Free的配合
他们用了StarBright Blue 520与700两个荧光通道的二抗。这带来一个直接好处:磷酸化抗体与总蛋白抗体可以在同一张膜、同一条泳道上同时检测,无需剥离重探。
剥离(stripping)是磷酸化研究里的一大误差来源——剥离效率不均、部分抗原丢失,都会让“磷酸化/总蛋白”这个比值失真。同膜多重检测直接消除了这一步。
而Stain-Free总蛋白信号在另一个独立通道中采集,与两个荧光通道互不干扰。三层信息——总蛋白、总目标蛋白、磷酸化目标蛋白——来自同一条泳道的同一次电泳。
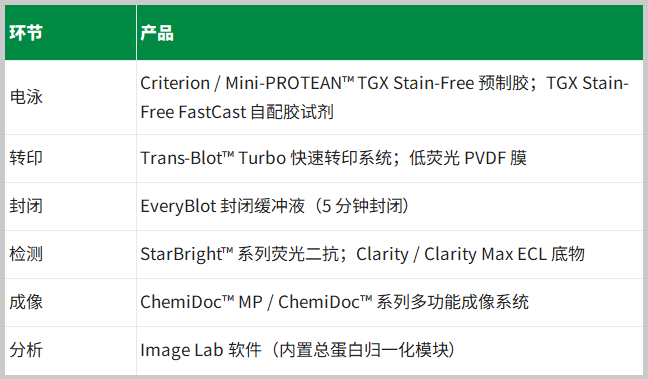
这套组合不是各自为政的产品堆叠,而是一条彼此咬合的工作流。
还有一层:Western Blot必须能独立验证质谱
这项研究的发现来自TMT16标记质谱(约2,455个蛋白,107个差异蛋白),Western Blot的角色是正交验证。
正交验证要成立,有一个前提:两种方法的定量必须相互独立。 质谱有自己的归一化流程(edgeR处理TMT数据);如果Western Blot这一侧的归一化引入了未知偏差,那么两者一旦不一致,你无法判断问题出在哪一方;而一旦一致,也可能只是巧合。
用总蛋白作为Western Blot的参照,本质上是让它建立在一个与质谱同源的物理基础上——都是“这份样本里有多少蛋白”,而不是“某个特定蛋白有多少”。这让两套方法的相互印证真正具备说服力。
Stain-Free技术原理
TGX Stain-Free胶中预混有三卤化合物。UV照射时,该化合物与蛋白质中的色氨酸残基发生共价反应,产生荧光信号,从而使凝胶或转印后膜上的全部蛋白可被直接成像。
由此带来的实际收益:
- 无需额外染色与脱色,电泳结束即可成像,省去数小时等待
- 可在转膜前后分别成像,直接验证转印效率——转膜不均、边缘效应、气泡都能当场发现,而不是在几天后看到诡异结果时才回头怀疑
- 完全兼容后续免疫检测,不影响抗体结合、化学发光或荧光信号
- 动态范围更宽,以全泳道所有蛋白的信号总和为参照,基数远大于单一条带,个别蛋白的波动会被稀释
值得一提的是,British Journal of Pharmacology等期刊的免疫印迹规范已明确推荐总蛋白归一化而非单一内参蛋白;越来越多的高影响力期刊在向同一方向靠拢。
完整产品线
写在最后
回到开头的问题:他们把总蛋白归一化用到了什么程度?
答案是——用到了足以支撑一个三重否定式结论的程度:皮层没变、总蛋白没变、剥离步骤没做。每一个“没变”都是一次对归一化精度的考验,而三个叠加在一起,容错空间几乎为零。
更根本的一点是:选择内参,本质上是在选择一个你相信不会变的东西。问题在于,神经科学研究的对象恰恰经常是“什么东西变了”——细胞组成变了、代谢状态变了、胶质活化了、突触蛋白重新分布了。
在这样的体系里坚持使用管家蛋白,等于在一个正在移动的参照系上做测量。
总蛋白归一化换了一个参照物:不是某个蛋白,而是全部蛋白。 它不要求你相信任何一个基因的表达稳定性,只要求电泳和成像本身是可靠的。
当你的结论是“A变了而B没变”、“这个脑区变了而那个脑区没变”、“磷酸化升高但总量不变”——这类双向断言最经不起归一化偏差。