蛋白质乙酰化:掌控基因表达与细胞命运的“可逆开关”?
蛋白质乙酰化:掌控基因表达与细胞命运的“可逆开关”?
简述
蛋白质乙酰化作为真核生物中最普遍且最重要的翻译后修饰之一,通过在赖氨酸残基上可逆地添加或去除乙酰基,精密调控染色质构象、基因转录活性及众多非组蛋白的功能。
蛋白质乙酰化作为真核生物中最普遍且最重要的翻译后修饰之一,通过在赖氨酸残基上可逆地添加或去除乙酰基,精密调控染色质构象、基因转录活性及众多非组蛋白的功能。
一、乙酰化的化学本质:它仅仅是“嫁接”一个化学基团吗?
蛋白质乙酰化是指将一个乙酰官能基团共价连接到另一有机化合物(通常是蛋白质的赖氨酸残基)上的生化过程。在细胞中,这一修饰并非随机发生,而是由两类功能相反的酶精密调控:组蛋白乙酰转移酶(HATs)负责催化乙酰基从乙酰辅酶A(Ac-CoA)转移至赖氨酸的ε-氨基上,而组蛋白去乙酰化酶(HDACs)则负责移除该乙酰基,使修饰恢复原状。这种“写入”与“擦除”的动态平衡,构成了乙酰化修饰可逆性的酶学基础。
乙酰化主要发生在蛋白质的赖氨酸残基上,对于组蛋白而言,其富含赖氨酸的N-末端尾部是乙酰化修饰的“热点区域”。核心组蛋白(H2A、H2B、H3、H4)的球形部缠绕DNA形成核小体,而暴露的尾部则通过赖氨酸残基与带负电的DNA或其他核小体发生静电作用,维持染色质的高度折叠结构。乙酰化的关键效应在于中和赖氨酸的正电荷,从而削弱组蛋白与DNA之间的结合力,导致核小体构象趋于松散。
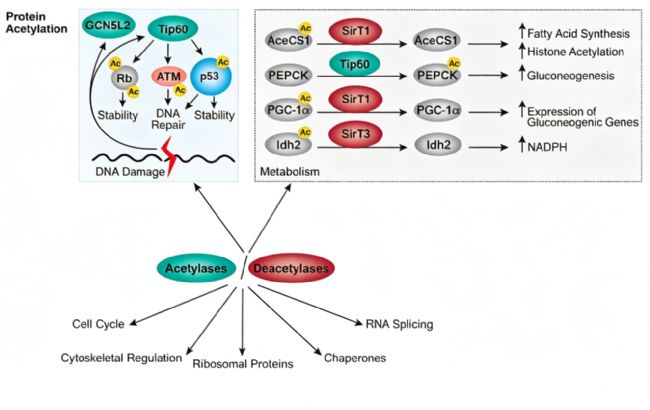
图 乙酰化与去乙酰化动态平衡调控染色质构象示意(图片来源:斯达特官网技术软文)
二、乙酰化如何成为基因转录的“指挥棒”?从染色质重塑到转录激活
乙酰化对基因表达最核心的调控逻辑,在于通过改变染色质构象来影响转录因子和RNA聚合酶的可及性。
当HATs在组蛋白尾部引入乙酰基后,局部染色质从紧密的“关闭”状态转变为松散的“开放”状态。这种构象变化为转录机器(包括基础转录因子和RNA聚合酶II)提供了物理上的结合空间,从而激活基因转录。相反,当HDACs去除乙酰基时,染色质恢复紧密折叠,转录活性随之被抑制。
例如,组蛋白H3第27位赖氨酸的乙酰化(H3K27ac)已被明确为活跃基因转录及增强子/超级增强子的标志,在促进癌基因表达中发挥重要作用。
除组蛋白外,越来越多的证据表明,乙酰化同样广泛修饰非组蛋白,通过调节其活性、稳定性、亚细胞定位及蛋白互作来影响细胞功能。例如,肿瘤抑制因子p53的C端结构域乙酰化可阻断其与负调控因子SET的结合,从而解除对p53转录活性的抑制,启动下游抑癌程序。
三、乙酰化与代谢的“双向对话”:乙酰辅酶A如何充当桥梁?
乙酰化修饰和细胞代谢其实绑得很紧,中间的枢纽是乙酰辅酶A(Ac-CoA),它是乙酰基的通用供体。Ac-CoA主要来源于葡萄糖代谢、脂肪酸β-氧化及氨基酸分解,因此细胞内Ac-CoA的丰度直接反映了细胞的能量与营养状态,并将代谢信号“翻译”为表观调控指令。
在植物中的研究揭示了一种精密的反馈机制:组蛋白乙酰转移酶复合物中的辅助亚基ADA2,其自身的赖氨酸乙酰化水平可感知细胞Ac-CoA浓度变化。高Ac-CoA水平促进ADA2乙酰化,进而标记其被E3泛素连接酶识别并降解;而低Ac-CoA水平下,稳定的ADA2则通过增强GCN5对Ac-CoA的亲和力,维持组蛋白乙酰化稳态,确保逆境响应基因的正常表达。这一定量调控模型清晰展示了代谢物如何直接塑造乙酰化谱。
近年来的突破性研究发现,乙酰化修饰不仅发生在翻译完成后。赖氨酰tRNA合成酶(KARS)可将食物来源的乙酰赖氨酸“误认为”底物,催化生成乙酰赖氨酰-tRNA,直接将乙酰赖氨酸掺入正在延伸的新生多肽链中。这种被称为“蛋白质共翻译修饰(coTM)”的模式,其修饰位点不受限于蛋白质表面,可发生于内部结构域,且不依赖经典的HAT酶,极大地拓展了我们对乙酰化修饰起源和位点分布的认知。
四、乙酰化失衡与疾病:如何从“表观失调”理解病理过程?
乙酰化与去乙酰化的平衡一旦被打破,将通过下游基因表达和蛋白功能紊乱参与多种疾病的发生发展。
肿瘤:组蛋白乙酰化水平异常可导致癌基因异常激活或抑癌基因沉默。例如,超级增强子区域H3K27ac水平升高可驱动肿瘤发生;而靶向HDAC的抑制剂已被探索用于逆转恶性表型。
代谢性疾病:在代谢功能障碍相关脂肪性肝病(MASLD)中,乙酰化广泛参与脂质代谢、炎症反应和氧化应激的调控,其相关酶的表达水平在患者肝脏组织中存在显著改变。
神经退行性疾病:在阿尔茨海默病中,SIRT2(一种去乙酰化酶)可通过去乙酰化淀粉样前体蛋白(APP)调控其加工路径,影响β-淀粉样蛋白的生成;HDAC6则参与Tau蛋白的去乙酰化和磷酸化调控,影响神经纤维缠结的形成。
五、如何“看清”乙酰化?关键技术路径解析
对乙酰化修饰的系统研究依赖可靠的技术手段,主要包括以下三类策略:
基于乙酰化抗体的富集与检测:利用特异性识别乙酰化赖氨酸残基的抗体进行免疫亲和纯化,可从复杂样本中富集乙酰化肽段或蛋白,随后结合质谱或免疫印迹进行鉴定与定量。这是目前乙酰化组学研究最核心的“抓手”。
基于质谱的乙酰化位点鉴定:通过液相色谱-串联质谱(LC-MS/MS)检测肽段的质量偏移(乙酰化使肽段质量增加约42.015 Da),并结合二级质谱碎片离子信息,可精确定位发生乙酰化的赖氨酸位点。
标记与非标记定量蛋白质组学:通过iTRAQ/TMT等化学标记或非标定量(Label-free)方法,结合抗体富集和高分辨质谱,可对不同样本间乙酰化水平的差异进行相对定量,揭示病理或干预状态下的乙酰化谱动态变化。
斯达特提供的组蛋白H3乙酰化重组兔单克隆抗体
做乙酰化的机制研究和靶标验证,检测工具的特异性直接决定数据能不能站得住。斯达特提供三款组蛋白H3乙酰化重组兔单克隆抗体:H3K27ac的S0B0546(克隆号S-699-50)、H3K36ac的S0B1224(S-1732-53),以及H3K18ac的S0B1154(S-1688-90)。
三款产品都做过靶点验证和批次间质控,可用于Western Blot、ChIP、IHC及免疫荧光等场景,支持染色质开放状态评估、转录调控机制解析和疾病模型中的乙酰化信号检测。
三款产品都做过靶点验证和批次间质控,可用于Western Blot、ChIP、IHC及免疫荧光等场景,支持染色质开放状态评估、转录调控机制解析和疾病模型中的乙酰化信号检测。
| 货号 | 产品名称 | 商品参数 | 参考货期 | 规格 | 价格 |
| S0B0546 | Histone H3 (acetyl K27) Recombinant Rabbit mAb (S-699-50) | 来源 : Rabbit; 标记 : Unconjugated |
请咨询客服 | 1ml / 25μl / 100μl | 询价 |
| S0B1224 | Histone H3 (acetyl K36) Recombinant Rabbit mAb (S-1732-53) | 来源 : Rabbit; 标记 : Unconjugated |
现货 | 25μl / 100μl | ¥600 |
| S0B1154 | Histone H3 (acetyl K18) Recombinant Rabbit mAb (S-1688-90) | 来源 : Rabbit; 标记 : Unconjugated |
现货 | 25μl / 100μl | ¥600 |
结语
蛋白质乙酰化连接着细胞代谢状态、染色质结构和基因表达,可逆性和动态性让它同时成了药物靶点和生物标志物来源。从翻译后修饰到共翻译修饰,我们对这张调控网络的理解还在补课。接下来真正要回答的,是同一个位点在不同组织和不同病程里,乙酰化水平该怎么解读。
本文由斯达特技术专家团审核发布
声明:本篇文章在创作中部分采用了人工智能辅助。如有任何内容涉及版权或知识产权问题,敬请告知,我们承诺将在第一时间核实并撤下。
买国产抗体,优选斯达特
杭州斯达特(www.starter-bio.com)是优宁维旗下品牌,志在为全球生命科学行业提供优质的抗体、蛋白、试剂盒等产品及研发服务。依托重组兔单抗、重组鼠单抗、快速鼠单抗、重组蛋白开发平台(E.coli、CHO、HEK293、InsectCells)、一步法ELISA平台、PTM泛修饰抗体平台等开发平台,已正式通过欧盟98/79/EC认证、ISO9001认证、ISO13485认证。