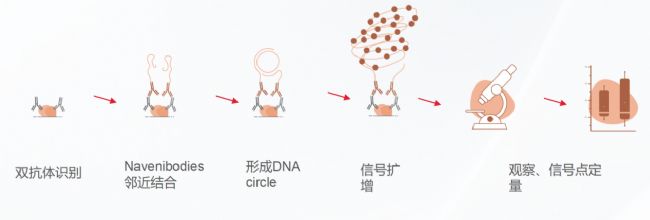
图1、PLA流程
一、突触蛋白互作、囊泡动力学与神经递质释放
PLA 可在纳米尺度原位检测突触前囊泡融合机器与突触后受体锚定复合物的蛋白互作。已有研究利用 PLA 证实 PlexinA4 与 ITGB1 在突触部位形成复合物,为 Sema3a–PlexinA4–ITGB1 信号通路驱动突触前稳态可塑性提供了原位证据 [1]。在神经递质释放调控方面,PLA 被用于检测 SH-SY5Y 细胞中 IRIS-1/IRIS-2 与 VAMP2 的相互作用,并证实 IRIS-1/2 沉默后 SNARE 复合物形成减少、去甲肾上腺素分泌降低,揭示 CD59 非 GPI 锚定亚型参与神经递质释放调控 [2]。
二、神经退行性疾病病理聚集体
PLA 能够特异性识别病理性蛋白寡聚体。利用 PLA 在 hiPSC 来源人神经元中验证了 Tau 与线粒体蛋白 TOMM40、TIMM13、ATP5IF1 的相互作用,发现 FTD 突变削弱这些互作并损害线粒体生物能量学 [3]。通过 AP-MS 鉴定出 CTLH E3 泛素连接酶复合物为 pT217 tau 的新型互作蛋白,并利用 PLA 在 AD 患者 FFPE 脑组织中验证了 WDR26 与 AT8 磷酸化 tau 的原位相互作用[4]。 [4]。基于聚集选择性抗体 MJF-14 的 PLA 可在 PD 和 DLB 患者脑组织中检测到广泛非包涵体 α-Syn 聚集,且该病理早于常规路易病理的出现。值得关注的是,该研究比较了不同商品化 PLA 试剂盒的检测差异:Duolink 对路易小体标记较弱,而 FLex可同时标记路易小体和非包涵体病理,提示 PLA 试剂盒的寡核苷酸连接子组成可影响其对不同 α-Syn 聚集形式的识别偏好 [5]。综述指出,LRRK2 相关 PD 中部分无经典路易包涵体的样本仍可检出大量 α-Syn 寡聚体,挑战了仅依靠包涵体定义疾病的传统观点 [6]。
三、信号转导与 GPCR 异聚体
PLA 能够捕捉信号通路中瞬时、微弱的蛋白互作。在原代混合胶质细胞中,PLA 被用于检测 TLR4 与 S1PR1 复合物的形成,并证实 Ponesimod 可阻断该复合物、减少神经炎症并增加 Aβ 清除 [7]。在 GPCR 异聚体方面,PLA 被用于检测 5-HT2AR–mGluR2 异聚体,发现 5-HT2AR 通过异聚化影响 mGluR2 的亚细胞定位和运输;在小鼠额叶皮层锥体神经元中,5-HT2AR 表达增强 mGluR2 的胞内定位,表明 GPCR 异聚化本身可能是一种受体运输和分选机制 [8]。
四、神经元–胶质细胞互作
PLA 通过检测相邻细胞膜表面蛋白的物理接近,实现细胞间 “分子对话” 的原位验证。利用 PLA 验证了星形胶质细胞 - 神经元共享表面蛋白质组(CS SPAN)中的 Slc4a4、Ttyh1、Atp1a2 等蛋白与星形胶质细胞或神经元表面的邻近关系,在分子层面定义了星形胶质细胞 - 神经元界面,并发现 CS SPAN 在亨廷顿病模型中发生改变且可被 ZFP 转录抑制子部分恢复 [9]。在脑出血后反应性星形胶质细胞中,原位 PLA 被用于检测 YAP 与 Cx43 的相互作用,揭示 Cx43 半通道抑制通过 YAP 信号发挥抗炎和神经保护作用的机制 [10]。
五、局部蛋白合成与轴突生长调控
FUNCAT-PLA 和 Puro-PLA 将代谢标记与 PLA 结合,实现新生蛋白的原位亚细胞可视化。PLA 技术被用于开发 FUNCAT-PLA 和 Puro-PLA,并在海马神经元轴突中检测到 Bassoon 的新生合成信号 [11]。利用 Puro-PLA 检测新合成的 HSPA8 肽段,揭示应激诱导的 Hspa8 mRNA 树突定位和局部翻译效率增加,以及 FUS 和 HNRNPA2B1 介导的 mRNA 运输对维持树突蛋白稳态的作用 [12]。在发育神经元中,PLA 被用于检测 YTHDF2–TUBB3、YTHDF2–FMRP 等蛋白对的相互作用,揭示 m⁶A 阅读器 YTHDF2 通过与 FMRP 形成运输复合体、与 CNOT1 形成降解复合体,在 m⁶A 标记的 mRNA 运输与降解之间进行选择性切换,从而调控皮层轴突投射 [13]。利用 Puro-PLA 检测 NMJ 处新合成的 TDP-43,发现肌肉来源的 miR-126a-5p 通过细胞外囊泡抑制运动神经元轴突中 TDP-43 的局部翻译,该机制在 ALS 中失调导致 NMJ 退化;miR-126 过表达可保护 NMJ 功能并延缓 SOD1^G93A 小鼠的运动衰退 [14]。此外,PLA 被用于在 DRG 神经元中检测 nucleolin 与 RPL11 的空间共定位,揭示重复元件 RNA 整合神经元生长调控回路 [15]。
参考文献
[1] Chipman, P.H. et al. (2025) ‘A unifying mechanism for presynaptic homeostatic plasticity at mammalian peripheral and central synapses’, Neuron, 113 (18), pp. 2945–2961.e6. DOI: 10.1016/j.neuron.2025.05.030.
[2] Golec, E. et al. (2025) ‘Neuronal CD59 isoforms IRIS-1 and IRIS-2 as regulators of neurotransmitter release with implications for Alzheimer’s disease’, Alzheimer’s Research & Therapy, 17 (1), Article 11. DOI: 10.1186/s13195-024-01660-z.
[3] Tracy, T.E. et al. (2022) ‘Tau interactome maps synaptic and mitochondrial processes associated with neurodegeneration’, Cell, 185 (4), pp. 712–728.e14. DOI: 10.1016/j.cell.2021.12.041.
[4] Kavanagh, T. et al. (2025) ‘The interactome of tau phosphorylated at T217 in Alzheimer’s disease human brain tissue’, Acta Neuropathologica, 149 (1), Article 44. DOI: 10.1007/s00401-025-02881-8.
[5] Jensen, N.M. et al. (2024) ‘MJF-14 proximity ligation assay detects early non-inclusion alpha-synuclein pathology with enhanced specificity and sensitivity’, npj Parkinson’s Disease, 10, Article 227. DOI: 10.1038/s41531-024-00841-9.
[6] Sekiya, H. et al. (2026) ‘Seeing invisible oligomers: rethinking α-synuclein pathology through proximity ligation assay’, Movement Disorders, 41 (7), pp. 1680–1689. DOI: 10.1002/mds.70335.
[7] Zhu, Z. et al. (2023) ‘The S1P receptor 1 antagonist Ponesimod reduces TLR4-induced neuroinflammation and increases Aβ clearance in 5XFAD mice’, eBioMedicine, 94, Article 104713. DOI: 10.1016/j.ebiom.2023.104713.
[8] Toneatti, R. et al. (2020) ‘Interclass GPCR heteromerization affects localization and trafficking’, Science Signaling, 13 (654), Article eaaw3122. DOI: 10.1126/scisignal.aaw3122.
[9] Wu, L. et al. (2025) ‘The cell-surface shared proteome of astrocytes and neurons and the molecular foundations of their multicellular interactions’, Neuron, 113 (16), pp. 2599–2620.e7. DOI: 10.1016/j.neuron.2025.05.019.
[10] Yu, H. et al. (2020) ‘Targeting connexin 43 provides anti-inflammatory effects after intracerebral hemorrhage injury by regulating YAP signaling’, Journal of Neuroinflammation, 17 (1), Article 322. DOI: 10.1186/s12974-020-01978-z.
[11] tom Dieck, S. et al. (2015) ‘Direct visualization of newly synthesized target proteins in situ’, Nature Methods, 12 (5), pp. 411–414. DOI: 10.1038/nmeth.3319.
[12] Alecki, C. et al. (2024) ‘Localized molecular chaperone synthesis maintains neuronal dendrite proteostasis’, Nature Communications, 15 (1), Article 10796. DOI: 10.1038/s41467-024-55055-7.
[13] Koo, B. et al. (2026) ‘The m⁶A reader YTHDF2 regulates mRNA transport and axon outgrowth in developing neurons’, Nature Communications, 17, Article 76161. DOI: 10.1038/s41467-026-76161-8.
[14] Ionescu, A. et al. (2025) ‘Muscle-derived miR-126 regulates TDP-43 axonal local synthesis and NMJ integrity in ALS models’, Nature Neuroscience, 28 (11), pp. 2201–2216. DOI: 10.1038/s41593-025-02062-6.
Zahavi, E.E. et al. (2025) ‘Repeat-element RNAs integrate a neuronal growth circuit’, Cell, 188 (16), pp. 4350–e22. DOI: 10.1016/j.cell.2025.04.030.
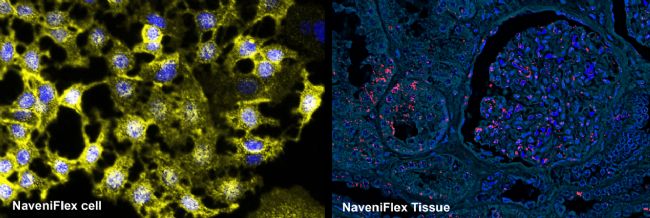
综上,邻位连接分析以单分子分辨率保留空间信息,在突触互作、病理聚集体识别与局部蛋白合成等神经科学问题上提供了传统生化方法难以替代的原位证据。实验设计时需重点控制抗体特异性、设置阴性对照,并结合图像定量统计以保证结果可重复。