使用ReacSight增强生物反应器阵列以实现自动测量和反应控制
跟踪智慧实验室的理论研究发展状况、产业发展动态、主要设备供应商产品研发动态、国内外智慧实验室建设成果现状等信息内容。本文由中科院上海生命科学信息中心与曼森生物合作供稿。
本期推文, 编 译 了 François Bertaux 等 发 表 在 Nature Communications 期刊上的研究论文《使用 ReacSight 增强生物反应器阵列以实现自动测量和反应控制》(Enhancing bioreactor arrays for automated measurements and reactive control with ReacSight),介绍了 ReacSight,一种用于自动测量和反应实验控制的增强生物反应器阵列的策略。ReacSight 利用低成本移液机器人进行样品采集、处理和装载,并提供灵活的仪器控制架构。作者展示了 ReacSight 在涉及酵母的三种实验应用中的能力,包括:基因表达的实时光遗传控制;营养缺乏对健康和细胞应激的影响;对双菌株混合群落的组成进行动态控制。
目录
/CONTENT
01/引言
02/结果
2.1 测量自动化、平台软件集成和 ReacSight 的反应性实验控制
2.2 反应性光遗传控制和酵母连续培养的单细胞解析特性
2.3 使用光实时控制基因表达
2.4 探索营养缺乏对健康和细胞压力的影响
2.5 ReacSight 是一种通用策略:通过吸液功能增强平板阅读器
03/讨论
01
引言
小规模、低成本的生物反应器正在成为微生物系统和合成生物学研究的有力工具。它们允许在长时间(几天)内严格控制细胞培养参数(例如温度、细胞密度、培养基更新率)。这些独特的特点使研究人员能够进行复杂的实验,并实现实验的高度再现性。例如,当药物选择压力随着耐药性的发展而增加时,抗生素耐药性的表征,细胞间通信合成路径的细胞密度控制表征,以及使用组合敲除文库在动态变化温度下酵母适应度的全基因组表征。
原位光密度测量只能提供总生物量浓度及其增长率的信息,而荧光测量的灵敏度低,背景高。通常还必须测量和跟踪培养细胞群体的关键特征,如基因表达水平、细胞应激水平、细胞大小和形态、细胞周期进程、不同基因型或表型的比例。研究人员通常需要手动提取、处理和测量培养样本,以便通过更灵敏和专业的仪器(如细胞仪、显微镜、测序仪)进行检测。手动干预通常繁琐、容易出错,并严重限制了可用的时间分辨率和范围(即夜间无时间点)。
它还阻碍了培养条件对此类措施的动态适应。这种反应性实验控制目前正引起系统生物学和合成生物学的兴趣。它既可以用来维持种群的某种状态(外部反馈控制),也可以用来最大化实验的价值(反应性实验设计)。例如,外部反馈控制可用于解开复杂的细胞耦合和信号通路调控,控制微生物群落的组成,或优化工业生物生产。反应性实验设计在长时间不确定实验(如人工进化实验)的背景下特别有用。通过实现实时参数推断和优化实验设计,也有助于加速基于模型的生物系统表征。
原则上,商业机器人设备和/或定制硬件可用于将生物反应器阵列连接到敏感的多样本(通常接受 96 孔板作为输入)测量设备。然而,这对设备采购、设备成本和软件集成提出了巨大挑战。当一个功能平台建立起来时,相应硬件和软件的升级和维护也极具挑战性。因此,迄今为止报告的例子很少。例如,只有两个小组展示了细菌或酵母培养物的自动细胞术和反应性光遗传学控制,设置仅限于单个连续培养物或具有有限连续培养能力的多个培养物。一组还展示了自动显微镜和反应性光遗传学控制单个酵母连续培养。
ReacSight, 一种通用且灵活的策略,用于增强生物反应器阵列的自动化测量和反应实验控制。ReacSight 非常适合集成开放源代码、开放硬件组件,但也可以容纳封闭源代码、 仅限 GUI 的组件(如细胞仪)。首先,作者使用 ReacSight 组装一个平台,实现基于细胞术的特征描述和平行酵母连续培养的反应性光遗传学控制。重要的是,作者构建了两个版本的平台,要么使用定制的生物反应器阵列,要么使用最新的低成本、开放硬件、商业化的光遗传学 Chi.生物反应器。
然后,作者在三个案例研究中证明了它的有用性。首先,作者在不同的生物反应器中用光实现基因表达的并行实时控制。第二,作者利用高度受控和信息丰富的竞争分析,探讨营养缺乏对健康和细胞应激的影响。第三,作者利用平台的养分稀缺性和反应性实验控制能力,实现对两个菌株混合群落的动态控制。最后,为了进一步证明 ReacSight 的通用性,作者使用它来增强具有吸液能力的平板阅读器,并对大肠杆菌临床分离物进行复杂的抗生素处理。
02
结果
2.1 测量自动化、平台软件集成和 ReacSight 的反应性实验控制
ReacSight 战略旨在增强用于自动测量和反应实验控制的生物反应器阵列, 以灵活和标准化的方式将硬件和软件元素结合起来(图 1)。吸管机器人用于以通用方式在任何生物反应器阵列和任何基于平板的测量设备之间建立物理连接(图 1a)。生物反应器培养物样本通过连接在机械臂上的泵控取样管线发送至移液机器人(取样)。使用移液机器人的一个主要优点是,在测量(处理)之前,可以在培养样本上自动执行不同的处理步骤。然后,样品由移液机器人转移至测量装置(装载)。当然,这需要测量设备的物理定位,以便当其装载托盘打开时,机器人手臂可以接近设备输入板的孔。部分接近设备输入板通常不是问题,因为机器人可用于在测量之间清洗输入板孔,允许随着时间的推移重复使用相同的孔(清洗)。重要的是,如果不需要反应性实验控制,或者如果不是基于测量,机器人功能也可以用于处理和存储培养样本,以便在实验结束时进行一次性离线测量,从而实现具有灵活时间分辨率和范围的自动测量。
ReacSight 还提供了一些软件挑战的解决方案,这些软件挑战应该解决,以解锁多生物反应器的自动测量和反应实验控制(图 1b)。首先,需要对平台的所有仪器(生物反应器、移液机器人、测量设备)进行程序控制。其次,一台计算机应该与所有仪器进行通信,以协调整个实验。ReacSight 将 Python 编程语言的多功能性和强大功能与 Flask web 应用程序框架的通用性和可伸缩性相结合,以应对这两个挑战。事实上,Python 非常适合轻松构建 API 来控制各种仪器:有完善的开源库用于控制微控制器(如 Arduinos),甚至用于基于“点击”的控制 GUI 专用软件驱动缺少 API 的封闭源代码仪器(pyautogui)。重要的是,开源、低成本的吸管机器人 OT-2(Opentrons)附带了本地 Python API。Hamilton 机器人也可以通过 Python API 进行控制。然后,Flask 可用于公开所有仪器 API,以便通过本地网络进行简单访问。然后,从一台计算机协调对多个仪器的控制的任务基本上简化为发送 HTTP 请求的简单任务,例如使用 Python 模块请求。HTTP 请求 还可以使用社区级数字分发平台Discord 实现从实验到远程用户的用户友好通信。
这种多功能仪表控制结构是 ReacSight 的关键组件。ReacSight 的另外两个关键组件是(1)通用的面向对象的事件实现(如果发生这种情况,请这样做),以促进反应性实验控制;(2)将所有仪器操作详尽记录到单个日志文件中。ReacSight 软件以及硬件的源文件在 ReacSight-Git 存储库中公开提供。
 图1 ReacSight:用于自动测量和反应实验控制的增强生物反应器阵列的策略。a 在硬件方面,ReacSight 利用吸管机器人(如低成本、开源 Opentrons OT-2)在任何多生物反应器设置(eVOLVER、Chi.Bio、custom……)和任何基于平板的测量设备(平板阅读器、细胞仪、高通量显微镜、pH 计……)的输入之间建立物理链接。如有必要,可使用移液机器人对生物反应器样本进行处理(稀释、固定、提取、纯化……),然后再装入测量装置。如果不需要反应实验控制,处理过的样品也可以存储在机器人平台上进行离线测量(OT-2 温度模块可以帮助保存对温度敏感的样品)。b 在软件方面,ReacSight 通过基于Python 和PythonWeb 应用程序框架 Flask 的多功能仪器控制体系结构实现了全平台集成。ReacSight 软件还提供了一个通用事件系统,以实现反应性实验控制。显示了反应实验控制的简单用例的示例代码。实验控制还可以使用Discord webhooks 将实验状态通知远程用户,并生成详尽的日志文件。
2.2 反应性光遗传控制和酵母连续培养的单细胞解析特性
作者首次应用 ReacSight 策略的动机是酵母合成生物学应用。在这种情况下,精确控制合成路径并在定义明确的环境条件下测量其输出,并具有足够的时间分辨率和范围是至关重要的。光遗传学为控制合成路径提供了一种极好的方法,生物反应器支持的连续培养是对环境条件进行长时间严格控制的理想方法。为了测量单个细胞的路径输出,细胞术提供了高灵敏度和高通量。因此,借助 ReacSight 策略,利用台式细胞仪作为测量设备,组装了一个完全自动化的实验平台,实现了对酵母连续培养物的反应性光遗传学控制和单细胞解析表征(图 2a)。
补充说明 2 提供了平台硬件和软件的详细信息,此处仅讨论关键要素。八个反应器与移液机器人相连,这意味着每个时间点都会填满一列取样板。虽然机器人可以接触到三列细胞仪输入板,但作者仅使用一列,由机器人进行广泛清洗,以实现小于 0.2%的残留,使用免疫磁珠进行验证。通常在机器人平台上安装两个倾翻箱和两个取样板(2×96=192 个样本),因此,在没有任何人为干预的情况下,八个反应器中的每一个都有 24 个时间点。为了实现基于细胞数据的反应性实验控制,作者开发并实施了算法,以在重叠荧光团之间执行自动选通和光谱反褶积(图 2b)。
作者首先通过对组成性表达来自染色体整合转录单位的各种荧光蛋白的酵母菌株进行长期恒浊培养来验证平台的性能(图 2c)。荧光团水平的分布是单峰的,随着时间的推移是稳定的,正如在具有组成型启动子的稳定生长条件下所预期的那样。mNeonGreen 和 mScarlet-I 在单色和三色菌株之间的分布完全重叠。这与从强 pTDH3 启动子表达一个或三个荧光蛋白对细胞生理学的影响可以忽略不计的假设是一致的,并且三色菌株中转录单位的相对位置(mCerulean 第一, mNeonGreen 第二,mCarlet-I)对基因表达的影响很小。与单色品系相比,三色品系中测得的 mCerulean 水平略高(~15%)。这可能是由于反褶积中的残余误差造成的,与自荧光和 mNeonGreen 相比,mCerulean 的亮度较低加剧了这种误差。为了验证平台的光遗传学能力,作者构建了一个基于 EL222 系统 17 的光诱导基因表达路径并对其进行了表征(图 2d)。正如预期的那样,应用不同的蓝光开-关时间模式导致荧光团水平的动态分布覆盖范围很广,从接近零水平(即几乎无法与自体荧光区分)到超过强组成启动子 pTDH3 获得的水平。高诱导表达水平的细胞间变异性也很低,变异系数(CV)值与 pTDH3 启动子相当(0.22 vs 0.20)。
作者组装的第一个平台使用了一个预先存在的定制光生生物反应器阵列。这种设置有几个优点(可靠性、工作容量范围广),但其他实验室无法轻易复制。由于 ReacSight 架构的模块化,可以通过将这个定制的生物反应器阵列与最近描述的开放硬件、光遗传学就绪的商用 Chi.生物反应器(图 2a(右图))交换,快速构建具有类似功能的平台的第二个版本。为了验证该平台的另一版本的性能,作者使用图 2d 中相同的菌株进行了光诱导实验,并获得了各种光诱导曲线的极好的反应器到反应器再现性。
 图 2 基于 ReacSight 的自动化平台组装,实现对酵母连续培养物的反应性光遗传学控制和单 细胞解析表征。a 平台概述。Opentrons OT-2 移液机器人用于将支持光基因的多生物反应器 连接到台式细胞仪(Guava EasyCyte 14HT,Luminex)。机器人用于稀释细胞仪输入板中的 新鲜培养样本,并在时间点之间清洗。“点击”Python 库 pyautogui 用于创建细胞仪仪器控制 API。定制算法是在 Python 中开发和实现的,用于实时自动选通和去卷积细胞数据。使用定 制的生物反应器装置(左图)或 Chi 生物反应器(右图)组装了两个版本的平台。b 选通和 反褶积算法说明。例如,显示了重叠荧光团 mCerulean 和 mNeonGreen 之间的反褶积。c 多 代单细胞基因表达分布的稳定性。从 pTDH3 启动子驱动的转录单位中组成性表达 mCerulean、 mNeonGreen 或 mCarlet-I 的菌株(“三色”菌株),整合到染色体中,在浊度调节器模式下生 长(OD 设定值=0.5,上限图),每小时采集一次细胞仪(垂直绿线)。所有时间点的荧光强 度分布(通过高斯核密度估计进行平滑)(选通、反褶积和前向散射归一化后,FSC)用不同 的颜色阴影绘制在一起(下图)。RPU:相对启动子单位(见方法)。为了简单起见,未显示 “三色”的 OD 数据,与其他类似。d 基于 EL222 系统的光驱动基因表达电路的特性。应用 三种不同的开-关蓝光时间剖面图(底部),每 45 分钟采集一次细胞仪。门控、去卷积、FSC 标准化数据的中位数如图所示(顶部)。此图中显示的所有生物反应器实验均在同一天与定 制生物反应器平台版本并行进行。源数据作为源数据文件提供。
2.3 使用光实时控制基因表达
为了展示平台的反应性光遗传控制能力,作者开始动态适应光刺激,以便将 荧光团水平保持在不同的目标设定点。这种用于体内基因表达调控的电子反馈有 助于在存在复杂细胞调控的情况下剖析内源性路径的功能,并有助于将合成系统 用于生物技术应用。作者首先构建并验证了光诱导基因表达的简单数学模型(图 3a)。将三个模型参数与图 2d 的表征数据进行联合拟合,得到了良好的定量一致 性。考虑到模型假设的简单性,这一点值得注意:光激活下的 mRNA 生成速率 恒定,每 mRNA 的翻译速率恒定,mRNA(大部分降解,半衰期为 20 分钟)和 蛋白质(大部分稀释,半衰率为 1.46 小时)的一级衰变。因此,当实验条件得到 很好的控制并且数据得到适当的处理时,人们可以希望用一小套简单的过程来定 量地解释生物系统的行为。然后,作者将拟合模型合并到模型预测控制算法中(图 3b)。该算法与 ReacSight 事件系统一起,实现了对不同反应器中不同目标的荧光 水平的精确实时控制(图 3c)。为了进一步证明平台的稳健性和再现性,作者在 几个月后进行了另一个单 8 反应器实验,涉及两个荧光团目标水平的四个重复反 应器运行。所有的重复都能很好地跟踪目标,并且控制算法决定的 光分布在相同目标的重复之间非常相似,但并不完全相同。
作者还研究了之前使用的诱导系统在更长时间尺度上的遗传稳定性。遗传稳 定性是工业生物生产的一个重要因素。作者观察到,EL222 驱动的 mNeonGreen 蛋白的诱导可以持续 5 天以上,并且具有很好的稳定性(图 3d 顶部)。更进一 步,作者测试了同一蛋白的分泌版本是否表现出类似的表达稳定性。作者观察到, 诱导约2天后细胞水平显著降低。细胞异质性也增加了(图3d右侧)。为了弥补细胞水平的下降,作者将表达盒整合成多个拷贝(三次,串联染色体插入)。诱导后,获得了非常高的荧光水平(图 3d 底部)。令人惊讶的是,这些水平比非分泌蛋白高一个数量级,并伴随着强烈的应激,正如未折叠蛋白应激报告所反映的那样(pUPR mScarletI)。诱导后,细胞内蛋白质水平逐渐下降。细胞内蛋白质水平显示出明显的双峰分布,强烈的遗传不稳定性迹象(图 3d 右侧)。最后,当以最大诱导水平的三分之一诱导时,相同的三重拷贝结构表现出非单调行为:高水平初始反应,随后细胞内水平缓慢下降,如完全诱导的三重结构,随后长期内部高蛋白水平的非预期缓慢恢复(图 3d 底部)。这种恢复可以通过细胞适应高生产需求来解释,或者更可能的是,通过选择高产亚群来解释,该亚群能够更好地保存 HIS3 选择标记,即使在完全培养基中也具有轻微的生长优势。这个实验证明了作者的平台能够执行长时间的实验,并以相对较高的时间分辨率提供单小区信息。此外,它促使探索和利用营养素可用性对健康和压力的影响。
 图 3 闭环:使用光实时控制基因表达。a 光驱动基因表达电路的简单 ODE 模型拟合到图 2d 的表征数据。拟合参数为γm=2.09 h−1,σ=0.64 RPU 小时−1,γFP=0.475 小时−1·km 被任 意设置为等于γm,以仅允许从蛋白质中值水平识别参数。b 实时控制基因表达的策略。每 小时进行一次细胞仪采集,在选通、反褶积和 FSC 归一化后,数据被送入模型预测控制(MPC) 算法。该算法使用该模型搜索 10 个周期为 30 分钟的工作循环(即 5 小时的后退地平线)的 最佳占空比序列,以跟踪目标水平。c 四种不同目标水平的实时控制结果,在不同的生物反应器中并行执行(自定义设置)。左:单个单元格的中位数(控制值)。右:单细胞随时间的 分布。请注意,所有绘图都使用线性比例。d 表达系统的长期稳定性和蛋白质分泌的影响。表达 EL222 驱动的 mNeonGreen 荧光报告子的细胞,无论是否分泌,在浊度调节器中生长 5 天,每 2 小时进行一次细胞仪测量。表示整个实验期间的平均表达水平。荧光分布也显示在 选定的时间点(诱导后 0、6、48 和 120 小时)。细胞也有分泌应激的荧光报告子(pUPRmScarlet-I)。还提供了三个拷贝中整合的 mNeonGreen 报告蛋白的分泌形式的结果。相关蛋 白(mNeonGreen 水平)和应激水平(mCarlet-I 水平)分布的时间演变如补充图 11 和 12 所 示。源数据作为源数据文件提供。
2.4
探索营养缺乏对健康和细胞压力的影响
荧光蛋白可以作为报告物来评估细胞的表型特征,也可以作为条形码来标记具有特定基因型的菌株。再加上生物反应器阵列的自动细胞仪,这种能力扩展了可能的实验范围:在动态控制环境中的多重菌株特性和竞争(图 4a)。事实上,一些荧光蛋白可用于基因分型,其他可用于表型分型。然后,自动细胞仪(包括原始数据分析)将提供关于不同菌株之间竞争动态和每个菌株的细胞状态分布动态的定量信息。根据实验的目标,这些丰富的信息可以反馈给实验控制,以适应每个反应器的环境参数。
作为可以进行此类实验的概念的第一个证明,作者开始探索营养缺乏对健康和细胞压力的影响(图 4b,左上角)。微生物群落中的不同物种根据其代谢多样性或专业性有不同的营养需求,因此它们的适合性不仅取决于外部环境因素,还取决于群落本身通过营养物质消耗、代谢物释放和其他细胞间耦合。与分批竞争分析相反,连续培养允许控制这些因素。例如,在恒浊器培养基中,营养素的可用性取决于营养素供应(即输入介质中的营养素水平)和细胞的营养素消耗(主要取决于 OD 设定值)。作者使用组氨酸营养不良作为营养缺乏的模型:对于 his3 突变细胞,组氨酸是一种必需的营养素。通过将 his3 突变细胞与野生型细胞在不同 OD 设定值和喂养介质中不同组氨酸浓度下进行竞争,可以测量营养缺乏如何影响适应性(图 4b,右上角)。在这两个菌株中使用应激报告子也可以了解营养缺乏情况下适应性和细胞压力之间的关系。作者将重点放在未折叠蛋白反应 (UPR)应激上,以研究营养应激是否会导致其他事先无关的应激类型,这将表明细胞生理学中的全局耦合。
组氨酸浓度为 4µM 时,在考虑的 OD 设定值(0.1-0.8)范围内,his3 突变细胞被野生型细胞强烈竞争(图 4b,左下角)。当浓度为 20µM 时,情况不再如此。在这种浓度下,野生型细胞的生长速度优势在 OD 设定值 0.6 以下接近零(剩余组氨酸足以使 his3 突变细胞正常生长),在最大 OD 设定点 0.8 时超过 0.2 h −1(剩余组胺过低,限制了 his3 突变体细胞的生长)。因此,对于这种营养供应水平,细胞的营养消耗水平对 his3 突变细胞的适应性有很大影响。4µM 到 20µM 之间 的这种定性变化与组氨酸的单个高亲和力转运体 HIP1 的 Km 常数报告值 17µM 高度一致。此外,因为组氨酸浓度为 4µM 的野生型和突变型细胞之间的生长速度差异接近甚至超过野生型细胞通常观察到的生长速度(在 0.3 到 0.45 h −1之间, 取决于 OD 设定值),作者得出结论,突变细胞在这些条件下完全生长。UPR 数据显示,在组氨酸浓度为 20µM 的所有 OD 设定点上,突变细胞和野生型细胞之间几乎没有差异,但在组氨酸含量为 4µM 时,突变细胞中的 UPR 反应明显激活 (图 4b,右下角)。因此,看似相似的生长表型(例如 4 和 20µM OD 为 0.8 的突 变细胞)可能对应于不同的生理状态(如不饱和蛋白反应应激水平的差异所揭示的)。
此外,为了展示基于菌株丰度数据的环境反应控制,作者着手动态控制两个菌株的比率。控制微生物培养物的组成和异质性有望实现更有效的生物加工策略。作者推断,当两种菌株中的一种对组氨酸具有营养缺陷时,培养物的 OD 可以用作方向盘。事实上,组氨酸生物合成突变生长速率在 20µM 的中等组氨酸浓度下对 OD 的强烈依赖性(图 4b,左下角)意味着可以通过切换恒浊器培养物的 OD 设定值来动态控制其生长速率。此外,如果这种菌株与组氨酸原营养菌菌株共同培养,但以 OD 独立的方式生长较慢,则可以实现两种菌株比率的双向控制(图 4c,左)。作者利用繁重的异源蛋白分泌构建了这种菌株。然后,作者构建了一个简单的模型来预测组氨酸营养不良菌株的(稳态)生长速率差异。将此模型用于模型预测控制和 ReacSight 事件系统,作者可以以完全自动化的方式在平行生物反应器(图 4c,右)中保持两种菌株的不同比率。然而,作者注意到稳态误差的系统存在。这种行为可能是由于慢菌株的生长速度意外恢复所致。由于在特征化实验中未观察到这种行为,作者假设这种差异是由于特征化或对照实验中使用的氨基酸供应混合物的组成不同(除了组氨酸外,Sigma 的组氨酸缺失补充物比 Formedium 的完整补充物更丰富)。
 图 4 探索和利用适应性、营养缺乏和细胞应激之间的关系。a 由于共培养、自动细胞仪和反应性实验控制,结合单细胞基因分型和表型分型的实验得以实现,以实时适应环境条件。b 左上角:必需营养素的可用性(例如 his3 突变株的组氨酸)取决于环境供应,也取决于通过营养素消耗的细胞密度。营养素供应不足会阻碍生长速度,并可能引发细胞应激。右上角:实验设计。野生型细胞(标记为 mCerulean 组成表达)与 his3 突变细胞共同培养。这两个菌株都含有一个 UPR 应激报告基因 mScarlet-I 的驱动表达。自动细胞仪能够将单个细胞分配 给其基因型,并监测菌株特异性 UPR 激活。这两种菌株相对数量的动态可以 推断突变细胞和野生型细胞在每种情况下的生长速度差异。左下图:两种不同介质组氨酸浓 度下突变细胞适应度缺陷的细胞密度依赖性。虚线表示野生型增长率对 OD 设定值的近似依赖性。右下角:每种情况下的菌株特异性 UPR 激活。c 左:双应变联合体的原理,其组成可以通过 OD 控制来控制。右:实施和演示。异源难折叠蛋白的分泌被用作营养独立的慢生长表型。使用模型预测控制和 ReacSight 事件系统对 OD 设定值进行动态控制,类似于图 3b (参见方法)。在时间 0 时开始蓝光,并在整个实验期间保持亮起,以诱导慢 his+菌株的慢 生长表型。作者注意到系统存在稳态误差,测得的比率低于目标值。在补充注释 3 中,作者 研究了限制控制性能的机制(慢生长表型的不稳定性、菌株识别错误和模型中未考虑的延 迟),还提供了其他控制实验的结果。源数据作为源数据文件提供。
2.5
ReacSight 是一种通用策略:通过吸液功能增强平板阅读器
为了说明 ReacSight 的通用性,将其作为通过连接实验室设备来生长细胞和 /或测量细胞读数以及吸管机器人来创建实验平台的策略,作者将 Tecan 平板阅读器与 Opentrons 吸管机器人连接起来(图 5a)。移液机器人和驱动读板器的计算机通过 Flask 连接。因为无法访问平板阅读器的 API,所以再次使用了基于 pyautogui 的“点击”控制策略。
在第一个应用中,作者使用移液机器人在生长条件下长时间保持细菌细胞数量。更具体地说,大肠杆菌临床分离物在两种不同的培养基(M9 葡萄糖加或不加 casamino 酸)中生长,并存在不同浓度的头孢噻肟(CTX),一种β-内酰胺抗生素。由于β-内酰胺酶的表达,所选菌株对头孢噻肟处理具有耐药性。它对 CTX 的最低抑制浓度为 2 mg/L。当细胞群 OD 的中位数达到目标水平时,介质将按照补偿蒸发的策略更新(图 5b,左)。通过所选策略,作者能够在至少 15 代细胞中 保持 OD 中值接近所选目标(0.05 或 0.1)(图 5b 右图)。有趣的是,作者观察到,当用 1 mg/L 头孢噻肟处理时,细胞在葡萄糖+酪氨酸钠中的抵抗力比单独在葡萄糖中更好。这有些令人惊讶,因为β-内酰胺类抗生素通常对快速生长的细胞有更强的影响。
在第二个应用中,作者使用该平台测试了在不同细胞密度下应用第二剂量头孢噻肟的效果。这些实验在概念上非常简单,但其结果很难预测。低浓度头孢噻肟抑制参与细胞分裂的 PBP3 蛋白,从而导致细丝形成,而高浓度头孢噻肟则抑制参与细胞壁维持的 PBP1 蛋白,并导致细菌溶解。由于成丝作用,即使没有细胞分裂,种群生物量在延长的时间内也可能继续呈指数增长。此外,死亡细胞释 放的β-内酰胺酶在环境中降解抗生素。这导致了细胞死亡和抗生素降解之间的时间赛跑,丝状物有助于延迟这一赛跑,同时增加生物量(图 5c 左)。因此,在不同细胞密度下应用第二剂量抗生素的实验有可能启发人们理解不同的作用(图 5c 中间)。当以 5 10−4 的光学密度开始时,单次处理的结果与分离物的 MIC 一 致,因为高于 MIC 的处理会导致生长明显停滞,而低于 MIC 的处理不会(图 5c, “培养基处理”)。还可以观察到,在前一种情况下,生长在数小时后恢复,这是酶介导的抗生素耐受的典型行为。这两个观察结果在使用 16 mg/L CTX 进行第二次处理的情况下仍然有效。有趣的是,当处理后生长停止时,OD 大约是处理时 OD 的 25 倍:12 10−3 ,6 10−2 和 12 10−2,处理时分别为 5 10−4 , 2.5 10−3 和 5 10−3。这表明,生长停止前活细胞对抗生素的降解是有限的,因此,生长停止之前只有有限数量的细胞死亡。因此,对抗生素处理的耐受性使细胞在死亡前的生物量增加了近 25 倍,然后由于酶介导的抗生素降解,使细胞在处理中存活下来,远远 超过其 MIC。还可以观察到,当初始处理为 4 mg/L 时,生长停止和再生之间的延迟相对恒定(~5 小时),与添加的抗生素总量无关(4 或 20 mg/L CTX)。这表明,生长停止后抗生素降解非常有效,延迟主要对应于无法检测到的再生所需的时间,此时活细胞的动态被死亡生物的光密度所掩盖。在作者的条件下,当第一次处理有效(4 或 16 mg/L)时,第二次处理似乎几乎没有效果。需要进行深入研究,以更量化的方式调查这些影响。
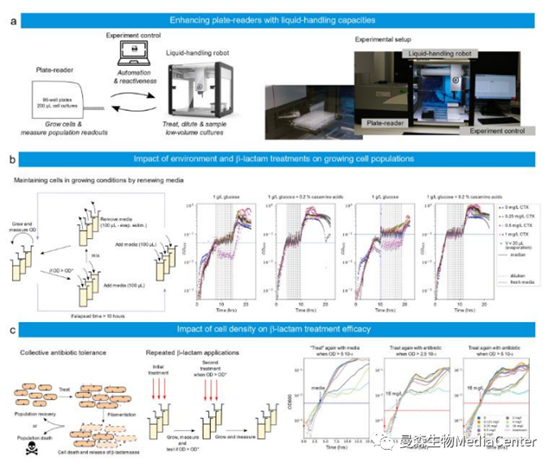 图 5 基于 ReacSight 的自动化平台组装,实现反应控制和低容量细菌培养物的表征。a 平台 概述。Opentrons OT-2 移液机器人用于提高读板器(Spark、Tecan)的容量。机器人用于在预先定义的 OD 处处理平板读取器中的培养物。b 左:大肠杆菌临床分离物可以通过以 OD 控制的方式更新培养基来维持在生长条件下。必须注意补偿延长时间范围内的蒸发。右图:富培养基中的细胞(葡萄糖+casaminoacids vs 单独葡萄糖)生长更快,但抵抗更好的亚 MIC 抗生素处理。左:由于两种效应的结合,细菌种群可能表现出对处理的恢复力。在单细胞水 平上,细胞可能通过丝状化耐受超过其 MIC 的抗生素浓度。基于纤维的耐受性允许在细胞 死亡之前增加生物量。在种群水平上,抗生素被环境中细胞死亡时释放的酶降解。最终结果 取决于细胞死亡和抗生素降解之间的竞争。中间:这两种效应的各自作用可以通过反复抗生 素处理来研究。右图:大肠杆菌临床分离物在初始 OD 为 5 10−4 时用不同浓度的 CTX(图 例)处理,第二次使用 16 mg/L CTX(红色)或单独使用介质(蓝色),使用用户定义的 OD (2.5 10−3 或 5 10−3 ). 由于仪器限制,OD 读数低于 10−3 个可靠性较差。源数据作为源数据文 件提供。
03
讨论
作者报道了 ReacSight 的开发,这是一种通过自动测量和反应实验控制来增 强多生物反应器设置的策略。ReacSight 通过允许研究人员将低成本开放硬件仪器(如 eVOLVER、Chi.Bio)和多功能、模块化、可编程移液机器人(如 Opentrons OT-2)与敏感但通常昂贵的独立仪器相结合,构建全自动化平台,大大拓宽了可行实验的范围。作者还证明,ReacSight 可用于增强具有吸液能力的平板阅读器。ReacSight 是通用的,易于部署,应该广泛用于微生物系统生物学和合成生物学社区。正如 Wong 及其同事所指出的,将多生物反应器装置连接到细胞仪进行自动测量,可以实现微生物培养物的单细胞分辨特性。事实上,在微生物系统和合成生物学的背景下,自动化细胞术几年前已经被少数实验室证明,但低吞吐量或依赖昂贵的自动化设备可能会阻碍这项技术的广泛采用。来自连续培养物的自动细胞仪与最近开发的光遗传学系统相结合,变得特别强大,能够对细胞过程进行有针对性、快速和成本效益的控制。作者使用 ReacSight 将两种不同的生物反应器设置(预先存在的自定义设置和最近的 Chi.Bio-optogenetic-ready 生物反应器) 与细胞仪连接起来。这证明了 ReacSight 战略的模块化,而使用 Chi Bio 生物反应器的平台版本说明了其他缺乏现有生物反应器设置的实验室如何能够以较小的时间和财务成本(不包括细胞仪的成本,尽管其价格昂贵,但即使在缺乏自动化的情况下也已经在实验室中广泛使用)构建这样的平台。作者通过以全自动方式并在不同的反应器中并行执行(1)光驱动的基因表达实时控制,展示了该平台的关键能力;(2)在严格控制的环境条件下,基于细胞状态的竞争分析;动态 控制两个菌株之间的比值。
然而,作者只触及了这些平台提供的巨大潜在应用空间的表面。最近通过核 糖体移码技术证明,菌株条形码可以扩展到 20 株带有两个荧光团的菌株,甚至可以扩展到 100 株带有三个荧光团。这种多路复用能力对于并行描述各种候选路径的输入-输出响应(或菌株背景库中路径行为的依赖性)特别有用(在反应器中 使用不同的光感应)。免疫珠可用于更多样化的基于细胞术的测量(机器人可实 现自动孵化和清洗,例如使用 Opentrons OT-2 磁性模块)。表面显示或 GPCR 信号等技术也可用于设计生物传感器菌株,用单细胞仪测量更多培养物尺寸,无需试剂成本。除了高性能的定量菌株表征外,此类平台还可用于生物技术应用。基于自动细胞仪的人工微生物联合体的组成,以及培养条件的动态控制(如本文所示,使用组氨酸营养不良和 OD),可以大大减少设计稳健共存机制的需要,因此可以使用更大多样性的联合体。
未来,希望许多基于 ReacSight 的平台将被组装起来,它们的设计将被广泛的社区共享,以大幅扩展实验能力,从而解决微生物学的基本问题,并释放合成生物学在生物技术应用中的潜力。
曼森自动化高通量发酵实验室
曼森机器人自动化技术可根据客户实际需求进行定制化(可实现硬件+软件协同)完成复杂流程自动化。
机器人自动化技术与平行反应器组合为生物领域科学研究助力,是实现生物技术biofoundry的重要技术基础;曼森生物致力于满足客户自动化、高通量的需求,推进合成生物技术产品快速产业化。


本期推文, 编 译 了 François Bertaux 等 发 表 在 Nature Communications 期刊上的研究论文《使用 ReacSight 增强生物反应器阵列以实现自动测量和反应控制》(Enhancing bioreactor arrays for automated measurements and reactive control with ReacSight),介绍了 ReacSight,一种用于自动测量和反应实验控制的增强生物反应器阵列的策略。ReacSight 利用低成本移液机器人进行样品采集、处理和装载,并提供灵活的仪器控制架构。作者展示了 ReacSight 在涉及酵母的三种实验应用中的能力,包括:基因表达的实时光遗传控制;营养缺乏对健康和细胞应激的影响;对双菌株混合群落的组成进行动态控制。
目录
/CONTENT
01/引言
02/结果
2.1 测量自动化、平台软件集成和 ReacSight 的反应性实验控制
2.2 反应性光遗传控制和酵母连续培养的单细胞解析特性
2.3 使用光实时控制基因表达
2.4 探索营养缺乏对健康和细胞压力的影响
2.5 ReacSight 是一种通用策略:通过吸液功能增强平板阅读器
03/讨论
01
引言
小规模、低成本的生物反应器正在成为微生物系统和合成生物学研究的有力工具。它们允许在长时间(几天)内严格控制细胞培养参数(例如温度、细胞密度、培养基更新率)。这些独特的特点使研究人员能够进行复杂的实验,并实现实验的高度再现性。例如,当药物选择压力随着耐药性的发展而增加时,抗生素耐药性的表征,细胞间通信合成路径的细胞密度控制表征,以及使用组合敲除文库在动态变化温度下酵母适应度的全基因组表征。
原位光密度测量只能提供总生物量浓度及其增长率的信息,而荧光测量的灵敏度低,背景高。通常还必须测量和跟踪培养细胞群体的关键特征,如基因表达水平、细胞应激水平、细胞大小和形态、细胞周期进程、不同基因型或表型的比例。研究人员通常需要手动提取、处理和测量培养样本,以便通过更灵敏和专业的仪器(如细胞仪、显微镜、测序仪)进行检测。手动干预通常繁琐、容易出错,并严重限制了可用的时间分辨率和范围(即夜间无时间点)。
它还阻碍了培养条件对此类措施的动态适应。这种反应性实验控制目前正引起系统生物学和合成生物学的兴趣。它既可以用来维持种群的某种状态(外部反馈控制),也可以用来最大化实验的价值(反应性实验设计)。例如,外部反馈控制可用于解开复杂的细胞耦合和信号通路调控,控制微生物群落的组成,或优化工业生物生产。反应性实验设计在长时间不确定实验(如人工进化实验)的背景下特别有用。通过实现实时参数推断和优化实验设计,也有助于加速基于模型的生物系统表征。
原则上,商业机器人设备和/或定制硬件可用于将生物反应器阵列连接到敏感的多样本(通常接受 96 孔板作为输入)测量设备。然而,这对设备采购、设备成本和软件集成提出了巨大挑战。当一个功能平台建立起来时,相应硬件和软件的升级和维护也极具挑战性。因此,迄今为止报告的例子很少。例如,只有两个小组展示了细菌或酵母培养物的自动细胞术和反应性光遗传学控制,设置仅限于单个连续培养物或具有有限连续培养能力的多个培养物。一组还展示了自动显微镜和反应性光遗传学控制单个酵母连续培养。
ReacSight, 一种通用且灵活的策略,用于增强生物反应器阵列的自动化测量和反应实验控制。ReacSight 非常适合集成开放源代码、开放硬件组件,但也可以容纳封闭源代码、 仅限 GUI 的组件(如细胞仪)。首先,作者使用 ReacSight 组装一个平台,实现基于细胞术的特征描述和平行酵母连续培养的反应性光遗传学控制。重要的是,作者构建了两个版本的平台,要么使用定制的生物反应器阵列,要么使用最新的低成本、开放硬件、商业化的光遗传学 Chi.生物反应器。
然后,作者在三个案例研究中证明了它的有用性。首先,作者在不同的生物反应器中用光实现基因表达的并行实时控制。第二,作者利用高度受控和信息丰富的竞争分析,探讨营养缺乏对健康和细胞应激的影响。第三,作者利用平台的养分稀缺性和反应性实验控制能力,实现对两个菌株混合群落的动态控制。最后,为了进一步证明 ReacSight 的通用性,作者使用它来增强具有吸液能力的平板阅读器,并对大肠杆菌临床分离物进行复杂的抗生素处理。
02
结果
2.1 测量自动化、平台软件集成和 ReacSight 的反应性实验控制
ReacSight 战略旨在增强用于自动测量和反应实验控制的生物反应器阵列, 以灵活和标准化的方式将硬件和软件元素结合起来(图 1)。吸管机器人用于以通用方式在任何生物反应器阵列和任何基于平板的测量设备之间建立物理连接(图 1a)。生物反应器培养物样本通过连接在机械臂上的泵控取样管线发送至移液机器人(取样)。使用移液机器人的一个主要优点是,在测量(处理)之前,可以在培养样本上自动执行不同的处理步骤。然后,样品由移液机器人转移至测量装置(装载)。当然,这需要测量设备的物理定位,以便当其装载托盘打开时,机器人手臂可以接近设备输入板的孔。部分接近设备输入板通常不是问题,因为机器人可用于在测量之间清洗输入板孔,允许随着时间的推移重复使用相同的孔(清洗)。重要的是,如果不需要反应性实验控制,或者如果不是基于测量,机器人功能也可以用于处理和存储培养样本,以便在实验结束时进行一次性离线测量,从而实现具有灵活时间分辨率和范围的自动测量。
ReacSight 还提供了一些软件挑战的解决方案,这些软件挑战应该解决,以解锁多生物反应器的自动测量和反应实验控制(图 1b)。首先,需要对平台的所有仪器(生物反应器、移液机器人、测量设备)进行程序控制。其次,一台计算机应该与所有仪器进行通信,以协调整个实验。ReacSight 将 Python 编程语言的多功能性和强大功能与 Flask web 应用程序框架的通用性和可伸缩性相结合,以应对这两个挑战。事实上,Python 非常适合轻松构建 API 来控制各种仪器:有完善的开源库用于控制微控制器(如 Arduinos),甚至用于基于“点击”的控制 GUI 专用软件驱动缺少 API 的封闭源代码仪器(pyautogui)。重要的是,开源、低成本的吸管机器人 OT-2(Opentrons)附带了本地 Python API。Hamilton 机器人也可以通过 Python API 进行控制。然后,Flask 可用于公开所有仪器 API,以便通过本地网络进行简单访问。然后,从一台计算机协调对多个仪器的控制的任务基本上简化为发送 HTTP 请求的简单任务,例如使用 Python 模块请求。HTTP 请求 还可以使用社区级数字分发平台Discord 实现从实验到远程用户的用户友好通信。
这种多功能仪表控制结构是 ReacSight 的关键组件。ReacSight 的另外两个关键组件是(1)通用的面向对象的事件实现(如果发生这种情况,请这样做),以促进反应性实验控制;(2)将所有仪器操作详尽记录到单个日志文件中。ReacSight 软件以及硬件的源文件在 ReacSight-Git 存储库中公开提供。
2.2 反应性光遗传控制和酵母连续培养的单细胞解析特性
作者首次应用 ReacSight 策略的动机是酵母合成生物学应用。在这种情况下,精确控制合成路径并在定义明确的环境条件下测量其输出,并具有足够的时间分辨率和范围是至关重要的。光遗传学为控制合成路径提供了一种极好的方法,生物反应器支持的连续培养是对环境条件进行长时间严格控制的理想方法。为了测量单个细胞的路径输出,细胞术提供了高灵敏度和高通量。因此,借助 ReacSight 策略,利用台式细胞仪作为测量设备,组装了一个完全自动化的实验平台,实现了对酵母连续培养物的反应性光遗传学控制和单细胞解析表征(图 2a)。
补充说明 2 提供了平台硬件和软件的详细信息,此处仅讨论关键要素。八个反应器与移液机器人相连,这意味着每个时间点都会填满一列取样板。虽然机器人可以接触到三列细胞仪输入板,但作者仅使用一列,由机器人进行广泛清洗,以实现小于 0.2%的残留,使用免疫磁珠进行验证。通常在机器人平台上安装两个倾翻箱和两个取样板(2×96=192 个样本),因此,在没有任何人为干预的情况下,八个反应器中的每一个都有 24 个时间点。为了实现基于细胞数据的反应性实验控制,作者开发并实施了算法,以在重叠荧光团之间执行自动选通和光谱反褶积(图 2b)。
作者首先通过对组成性表达来自染色体整合转录单位的各种荧光蛋白的酵母菌株进行长期恒浊培养来验证平台的性能(图 2c)。荧光团水平的分布是单峰的,随着时间的推移是稳定的,正如在具有组成型启动子的稳定生长条件下所预期的那样。mNeonGreen 和 mScarlet-I 在单色和三色菌株之间的分布完全重叠。这与从强 pTDH3 启动子表达一个或三个荧光蛋白对细胞生理学的影响可以忽略不计的假设是一致的,并且三色菌株中转录单位的相对位置(mCerulean 第一, mNeonGreen 第二,mCarlet-I)对基因表达的影响很小。与单色品系相比,三色品系中测得的 mCerulean 水平略高(~15%)。这可能是由于反褶积中的残余误差造成的,与自荧光和 mNeonGreen 相比,mCerulean 的亮度较低加剧了这种误差。为了验证平台的光遗传学能力,作者构建了一个基于 EL222 系统 17 的光诱导基因表达路径并对其进行了表征(图 2d)。正如预期的那样,应用不同的蓝光开-关时间模式导致荧光团水平的动态分布覆盖范围很广,从接近零水平(即几乎无法与自体荧光区分)到超过强组成启动子 pTDH3 获得的水平。高诱导表达水平的细胞间变异性也很低,变异系数(CV)值与 pTDH3 启动子相当(0.22 vs 0.20)。
作者组装的第一个平台使用了一个预先存在的定制光生生物反应器阵列。这种设置有几个优点(可靠性、工作容量范围广),但其他实验室无法轻易复制。由于 ReacSight 架构的模块化,可以通过将这个定制的生物反应器阵列与最近描述的开放硬件、光遗传学就绪的商用 Chi.生物反应器(图 2a(右图))交换,快速构建具有类似功能的平台的第二个版本。为了验证该平台的另一版本的性能,作者使用图 2d 中相同的菌株进行了光诱导实验,并获得了各种光诱导曲线的极好的反应器到反应器再现性。
2.3 使用光实时控制基因表达
为了展示平台的反应性光遗传控制能力,作者开始动态适应光刺激,以便将 荧光团水平保持在不同的目标设定点。这种用于体内基因表达调控的电子反馈有 助于在存在复杂细胞调控的情况下剖析内源性路径的功能,并有助于将合成系统 用于生物技术应用。作者首先构建并验证了光诱导基因表达的简单数学模型(图 3a)。将三个模型参数与图 2d 的表征数据进行联合拟合,得到了良好的定量一致 性。考虑到模型假设的简单性,这一点值得注意:光激活下的 mRNA 生成速率 恒定,每 mRNA 的翻译速率恒定,mRNA(大部分降解,半衰期为 20 分钟)和 蛋白质(大部分稀释,半衰率为 1.46 小时)的一级衰变。因此,当实验条件得到 很好的控制并且数据得到适当的处理时,人们可以希望用一小套简单的过程来定 量地解释生物系统的行为。然后,作者将拟合模型合并到模型预测控制算法中(图 3b)。该算法与 ReacSight 事件系统一起,实现了对不同反应器中不同目标的荧光 水平的精确实时控制(图 3c)。为了进一步证明平台的稳健性和再现性,作者在 几个月后进行了另一个单 8 反应器实验,涉及两个荧光团目标水平的四个重复反 应器运行。所有的重复都能很好地跟踪目标,并且控制算法决定的 光分布在相同目标的重复之间非常相似,但并不完全相同。
作者还研究了之前使用的诱导系统在更长时间尺度上的遗传稳定性。遗传稳 定性是工业生物生产的一个重要因素。作者观察到,EL222 驱动的 mNeonGreen 蛋白的诱导可以持续 5 天以上,并且具有很好的稳定性(图 3d 顶部)。更进一 步,作者测试了同一蛋白的分泌版本是否表现出类似的表达稳定性。作者观察到, 诱导约2天后细胞水平显著降低。细胞异质性也增加了(图3d右侧)。为了弥补细胞水平的下降,作者将表达盒整合成多个拷贝(三次,串联染色体插入)。诱导后,获得了非常高的荧光水平(图 3d 底部)。令人惊讶的是,这些水平比非分泌蛋白高一个数量级,并伴随着强烈的应激,正如未折叠蛋白应激报告所反映的那样(pUPR mScarletI)。诱导后,细胞内蛋白质水平逐渐下降。细胞内蛋白质水平显示出明显的双峰分布,强烈的遗传不稳定性迹象(图 3d 右侧)。最后,当以最大诱导水平的三分之一诱导时,相同的三重拷贝结构表现出非单调行为:高水平初始反应,随后细胞内水平缓慢下降,如完全诱导的三重结构,随后长期内部高蛋白水平的非预期缓慢恢复(图 3d 底部)。这种恢复可以通过细胞适应高生产需求来解释,或者更可能的是,通过选择高产亚群来解释,该亚群能够更好地保存 HIS3 选择标记,即使在完全培养基中也具有轻微的生长优势。这个实验证明了作者的平台能够执行长时间的实验,并以相对较高的时间分辨率提供单小区信息。此外,它促使探索和利用营养素可用性对健康和压力的影响。
2.4
探索营养缺乏对健康和细胞压力的影响
荧光蛋白可以作为报告物来评估细胞的表型特征,也可以作为条形码来标记具有特定基因型的菌株。再加上生物反应器阵列的自动细胞仪,这种能力扩展了可能的实验范围:在动态控制环境中的多重菌株特性和竞争(图 4a)。事实上,一些荧光蛋白可用于基因分型,其他可用于表型分型。然后,自动细胞仪(包括原始数据分析)将提供关于不同菌株之间竞争动态和每个菌株的细胞状态分布动态的定量信息。根据实验的目标,这些丰富的信息可以反馈给实验控制,以适应每个反应器的环境参数。
作为可以进行此类实验的概念的第一个证明,作者开始探索营养缺乏对健康和细胞压力的影响(图 4b,左上角)。微生物群落中的不同物种根据其代谢多样性或专业性有不同的营养需求,因此它们的适合性不仅取决于外部环境因素,还取决于群落本身通过营养物质消耗、代谢物释放和其他细胞间耦合。与分批竞争分析相反,连续培养允许控制这些因素。例如,在恒浊器培养基中,营养素的可用性取决于营养素供应(即输入介质中的营养素水平)和细胞的营养素消耗(主要取决于 OD 设定值)。作者使用组氨酸营养不良作为营养缺乏的模型:对于 his3 突变细胞,组氨酸是一种必需的营养素。通过将 his3 突变细胞与野生型细胞在不同 OD 设定值和喂养介质中不同组氨酸浓度下进行竞争,可以测量营养缺乏如何影响适应性(图 4b,右上角)。在这两个菌株中使用应激报告子也可以了解营养缺乏情况下适应性和细胞压力之间的关系。作者将重点放在未折叠蛋白反应 (UPR)应激上,以研究营养应激是否会导致其他事先无关的应激类型,这将表明细胞生理学中的全局耦合。
组氨酸浓度为 4µM 时,在考虑的 OD 设定值(0.1-0.8)范围内,his3 突变细胞被野生型细胞强烈竞争(图 4b,左下角)。当浓度为 20µM 时,情况不再如此。在这种浓度下,野生型细胞的生长速度优势在 OD 设定值 0.6 以下接近零(剩余组氨酸足以使 his3 突变细胞正常生长),在最大 OD 设定点 0.8 时超过 0.2 h −1(剩余组胺过低,限制了 his3 突变体细胞的生长)。因此,对于这种营养供应水平,细胞的营养消耗水平对 his3 突变细胞的适应性有很大影响。4µM 到 20µM 之间 的这种定性变化与组氨酸的单个高亲和力转运体 HIP1 的 Km 常数报告值 17µM 高度一致。此外,因为组氨酸浓度为 4µM 的野生型和突变型细胞之间的生长速度差异接近甚至超过野生型细胞通常观察到的生长速度(在 0.3 到 0.45 h −1之间, 取决于 OD 设定值),作者得出结论,突变细胞在这些条件下完全生长。UPR 数据显示,在组氨酸浓度为 20µM 的所有 OD 设定点上,突变细胞和野生型细胞之间几乎没有差异,但在组氨酸含量为 4µM 时,突变细胞中的 UPR 反应明显激活 (图 4b,右下角)。因此,看似相似的生长表型(例如 4 和 20µM OD 为 0.8 的突 变细胞)可能对应于不同的生理状态(如不饱和蛋白反应应激水平的差异所揭示的)。
此外,为了展示基于菌株丰度数据的环境反应控制,作者着手动态控制两个菌株的比率。控制微生物培养物的组成和异质性有望实现更有效的生物加工策略。作者推断,当两种菌株中的一种对组氨酸具有营养缺陷时,培养物的 OD 可以用作方向盘。事实上,组氨酸生物合成突变生长速率在 20µM 的中等组氨酸浓度下对 OD 的强烈依赖性(图 4b,左下角)意味着可以通过切换恒浊器培养物的 OD 设定值来动态控制其生长速率。此外,如果这种菌株与组氨酸原营养菌菌株共同培养,但以 OD 独立的方式生长较慢,则可以实现两种菌株比率的双向控制(图 4c,左)。作者利用繁重的异源蛋白分泌构建了这种菌株。然后,作者构建了一个简单的模型来预测组氨酸营养不良菌株的(稳态)生长速率差异。将此模型用于模型预测控制和 ReacSight 事件系统,作者可以以完全自动化的方式在平行生物反应器(图 4c,右)中保持两种菌株的不同比率。然而,作者注意到稳态误差的系统存在。这种行为可能是由于慢菌株的生长速度意外恢复所致。由于在特征化实验中未观察到这种行为,作者假设这种差异是由于特征化或对照实验中使用的氨基酸供应混合物的组成不同(除了组氨酸外,Sigma 的组氨酸缺失补充物比 Formedium 的完整补充物更丰富)。
2.5
ReacSight 是一种通用策略:通过吸液功能增强平板阅读器
为了说明 ReacSight 的通用性,将其作为通过连接实验室设备来生长细胞和 /或测量细胞读数以及吸管机器人来创建实验平台的策略,作者将 Tecan 平板阅读器与 Opentrons 吸管机器人连接起来(图 5a)。移液机器人和驱动读板器的计算机通过 Flask 连接。因为无法访问平板阅读器的 API,所以再次使用了基于 pyautogui 的“点击”控制策略。
在第一个应用中,作者使用移液机器人在生长条件下长时间保持细菌细胞数量。更具体地说,大肠杆菌临床分离物在两种不同的培养基(M9 葡萄糖加或不加 casamino 酸)中生长,并存在不同浓度的头孢噻肟(CTX),一种β-内酰胺抗生素。由于β-内酰胺酶的表达,所选菌株对头孢噻肟处理具有耐药性。它对 CTX 的最低抑制浓度为 2 mg/L。当细胞群 OD 的中位数达到目标水平时,介质将按照补偿蒸发的策略更新(图 5b,左)。通过所选策略,作者能够在至少 15 代细胞中 保持 OD 中值接近所选目标(0.05 或 0.1)(图 5b 右图)。有趣的是,作者观察到,当用 1 mg/L 头孢噻肟处理时,细胞在葡萄糖+酪氨酸钠中的抵抗力比单独在葡萄糖中更好。这有些令人惊讶,因为β-内酰胺类抗生素通常对快速生长的细胞有更强的影响。
在第二个应用中,作者使用该平台测试了在不同细胞密度下应用第二剂量头孢噻肟的效果。这些实验在概念上非常简单,但其结果很难预测。低浓度头孢噻肟抑制参与细胞分裂的 PBP3 蛋白,从而导致细丝形成,而高浓度头孢噻肟则抑制参与细胞壁维持的 PBP1 蛋白,并导致细菌溶解。由于成丝作用,即使没有细胞分裂,种群生物量在延长的时间内也可能继续呈指数增长。此外,死亡细胞释 放的β-内酰胺酶在环境中降解抗生素。这导致了细胞死亡和抗生素降解之间的时间赛跑,丝状物有助于延迟这一赛跑,同时增加生物量(图 5c 左)。因此,在不同细胞密度下应用第二剂量抗生素的实验有可能启发人们理解不同的作用(图 5c 中间)。当以 5 10−4 的光学密度开始时,单次处理的结果与分离物的 MIC 一 致,因为高于 MIC 的处理会导致生长明显停滞,而低于 MIC 的处理不会(图 5c, “培养基处理”)。还可以观察到,在前一种情况下,生长在数小时后恢复,这是酶介导的抗生素耐受的典型行为。这两个观察结果在使用 16 mg/L CTX 进行第二次处理的情况下仍然有效。有趣的是,当处理后生长停止时,OD 大约是处理时 OD 的 25 倍:12 10−3 ,6 10−2 和 12 10−2,处理时分别为 5 10−4 , 2.5 10−3 和 5 10−3。这表明,生长停止前活细胞对抗生素的降解是有限的,因此,生长停止之前只有有限数量的细胞死亡。因此,对抗生素处理的耐受性使细胞在死亡前的生物量增加了近 25 倍,然后由于酶介导的抗生素降解,使细胞在处理中存活下来,远远 超过其 MIC。还可以观察到,当初始处理为 4 mg/L 时,生长停止和再生之间的延迟相对恒定(~5 小时),与添加的抗生素总量无关(4 或 20 mg/L CTX)。这表明,生长停止后抗生素降解非常有效,延迟主要对应于无法检测到的再生所需的时间,此时活细胞的动态被死亡生物的光密度所掩盖。在作者的条件下,当第一次处理有效(4 或 16 mg/L)时,第二次处理似乎几乎没有效果。需要进行深入研究,以更量化的方式调查这些影响。
03
讨论
作者报道了 ReacSight 的开发,这是一种通过自动测量和反应实验控制来增 强多生物反应器设置的策略。ReacSight 通过允许研究人员将低成本开放硬件仪器(如 eVOLVER、Chi.Bio)和多功能、模块化、可编程移液机器人(如 Opentrons OT-2)与敏感但通常昂贵的独立仪器相结合,构建全自动化平台,大大拓宽了可行实验的范围。作者还证明,ReacSight 可用于增强具有吸液能力的平板阅读器。ReacSight 是通用的,易于部署,应该广泛用于微生物系统生物学和合成生物学社区。正如 Wong 及其同事所指出的,将多生物反应器装置连接到细胞仪进行自动测量,可以实现微生物培养物的单细胞分辨特性。事实上,在微生物系统和合成生物学的背景下,自动化细胞术几年前已经被少数实验室证明,但低吞吐量或依赖昂贵的自动化设备可能会阻碍这项技术的广泛采用。来自连续培养物的自动细胞仪与最近开发的光遗传学系统相结合,变得特别强大,能够对细胞过程进行有针对性、快速和成本效益的控制。作者使用 ReacSight 将两种不同的生物反应器设置(预先存在的自定义设置和最近的 Chi.Bio-optogenetic-ready 生物反应器) 与细胞仪连接起来。这证明了 ReacSight 战略的模块化,而使用 Chi Bio 生物反应器的平台版本说明了其他缺乏现有生物反应器设置的实验室如何能够以较小的时间和财务成本(不包括细胞仪的成本,尽管其价格昂贵,但即使在缺乏自动化的情况下也已经在实验室中广泛使用)构建这样的平台。作者通过以全自动方式并在不同的反应器中并行执行(1)光驱动的基因表达实时控制,展示了该平台的关键能力;(2)在严格控制的环境条件下,基于细胞状态的竞争分析;动态 控制两个菌株之间的比值。
然而,作者只触及了这些平台提供的巨大潜在应用空间的表面。最近通过核 糖体移码技术证明,菌株条形码可以扩展到 20 株带有两个荧光团的菌株,甚至可以扩展到 100 株带有三个荧光团。这种多路复用能力对于并行描述各种候选路径的输入-输出响应(或菌株背景库中路径行为的依赖性)特别有用(在反应器中 使用不同的光感应)。免疫珠可用于更多样化的基于细胞术的测量(机器人可实 现自动孵化和清洗,例如使用 Opentrons OT-2 磁性模块)。表面显示或 GPCR 信号等技术也可用于设计生物传感器菌株,用单细胞仪测量更多培养物尺寸,无需试剂成本。除了高性能的定量菌株表征外,此类平台还可用于生物技术应用。基于自动细胞仪的人工微生物联合体的组成,以及培养条件的动态控制(如本文所示,使用组氨酸营养不良和 OD),可以大大减少设计稳健共存机制的需要,因此可以使用更大多样性的联合体。
未来,希望许多基于 ReacSight 的平台将被组装起来,它们的设计将被广泛的社区共享,以大幅扩展实验能力,从而解决微生物学的基本问题,并释放合成生物学在生物技术应用中的潜力。
曼森自动化高通量发酵实验室
曼森机器人自动化技术可根据客户实际需求进行定制化(可实现硬件+软件协同)完成复杂流程自动化。
机器人自动化技术与平行反应器组合为生物领域科学研究助力,是实现生物技术biofoundry的重要技术基础;曼森生物致力于满足客户自动化、高通量的需求,推进合成生物技术产品快速产业化。
曼森高通量发酵平台
曼森实验室自动化系列
曼森高通量自动样品检测机器人
Mediacenter Editor | 曼森编辑
文章来源:本文由中科院上海生命科学信息中心与曼森生物合作供稿
排版校对:刘娟娟编辑
内容审核:郝玉有博士