PSI-NDH超复合体防止冷胁迫诱导PSI光抑制
关键词:PSI-NDH,冷胁迫,光抑制
冷胁迫(0°C以上、低于植物最适温度)抑制二氧化碳固定,引发光系统光抑制,限制作物产量。PSII光抑制常可经高效的修复循环逆转,甚至可作为牺牲策略保护PSI;而PSI修复极慢,一旦光抑制便造成严重的叶片损伤。在黄瓜、番茄、马铃薯、棉花与甘蔗等多种作物中,冷胁迫下PSI光抑制极易发生,导致明显的生长抑制。PSI光抑制的主因是受体侧过度还原引发的氧化损伤:PSI中电子载体(叶醌A1与铁硫簇FX、FA/FB)的氧化还原电位足够低,可将氧气还原为超氧阴离子;当受体侧被完全还原时,P700+/A0或P700+/A1自由基对间的电荷重组会产生三线态P700,进而生成单线态氧。保护策略一方面依赖供体侧调控,特别是细胞色素b6f复合体处的光合控制与PSII光抑制对电子流的压制;另一方面依赖PSI受体侧的替代电子库。多数植物在进化中丢失了黄素二铁蛋白(FLV),其可将电子从PSI安全地传递给氧气还原为水,因此被子植物转而依赖光呼吸与循环电子流(CEF)等途径。叶绿体NDH复合体由SubM、SubA、SubE、SubB与腔侧SubL五个亚复合体组成,负责将电子从铁氧还蛋白(Fd)传递至质体醌(PQ);NDH被两个PSI夹在中间形成PSI-NDH超复合体,该结合由特化捕光蛋白Lhca5(介导右PSI)与Lhca6(介导左PSI)实现。尽管结构研究深入,拟南芥NDH缺失突变体在正常条件下与野生型表型相当,其环境胁迫耐受功能长期悬而未决。此前研究提示冷胁迫下NDH积累增加、玉米NDH水平降低会削弱耐冷性,且冷敏感黄瓜品种的NDH活性在冷处理1小时内丧失并引发PSI光抑制,但其普遍性与失活机制尚不清楚。
近期,日本神户大学Takeuchi与京都大学Ifuku团队合作在New Phytologist发表题为The PSI-NDH supercomplex prevents chilling-induced PSI photoinhibition的研究论文。该研究回答两个问题:其一,利用NDH缺失水稻突变体crr6检验NDH对冷胁迫下PSI的保护作用是否具有物种普遍性;其二,以黄瓜为材料解析冷胁迫下NDH失活的分子机制。研究发现,crr6在冷胁迫下表现出显著的PSI光抑制,而表达FLV的水稻因PSI下游获得替代电子库而不发生PSI光抑制,证明NDH电子库容量对冷胁迫下PSI保护至关重要。进一步研究显示,冷胁迫破坏黄瓜PSI-NDH超复合体,Lhca损伤使NDH先脱离结合较弱的右PSI、再脱离左PSI,最终单体化并丧失活性。这项研究揭示了PSI-NDH超复合体稳定性对维持NDH功能、防止冷诱导PSI光抑制的决定性作用。
Dual-PAM测定显示,对照条件下crr6在光合诱导初期Y(II)略低、P700氧化比率Y(ND)上升延迟、未被氧化的P700比率Y(NA)更高,即PSI受体侧短暂过度还原,随光照延长差异消失(图2a-c)。冷处理6小时后,crr6的Y(II)与Y(ND)持续偏低、Y(NA)持续偏高(图2d-f)。由于Y(NA)与还原态Fd积累正相关,这表明NDH缺失使电子在PSI过度积累。将Y(ND)对Y(II)作图,给定Y(II)下crr6的Y(ND)下降幅度远大于野生型,说明其PSI更易过度还原(图2g,h)。远红光(FR)可将PSI维持于氧化态,冷胁迫下补加FR光显著缓解野生型与crr6的PSI光抑制(图2i)。综上,NDH经氧化Fd在水稻中抑制冷胁迫下的PSI过度还原,与黄瓜中的结论一致。
为验证抑制PSI过度还原即可防止冷诱导光抑制,研究人员检测了在PSI下游安全耗散电子的FLV表达水稻(日本晴背景)。冷胁迫下,FLV株系的Pm在6与24小时均保持高位,PSI光抑制未发生,PSII光抑制亦较野生型减轻(图3a-e)。冷处理中FLV株系Y(II)与Y(ND)更高、Y(NA)更低(图3f-h);Y(II)与P700+比率关系显示,给定Y(II)下野生型的P700+比率在冷后下降,而FLV株系基本不变(图3i,j),证明其PSI过度还原被有效压制。这些结果与NDH缺失的表型互为镜像,共同证明PSI受体侧氧化能力是冷胁迫下PSI保护的决定因素。
冷敏感黄瓜品种HG经3小时光下冷处理后活性PSI下降,回暖2天后叶片明显漂白(图4a,b)。NDH活性以照光结束后叶绿素荧光瞬时上升(PIFR)检测:光下冷处理1小时后NDH活性完全丧失,27 °C恢复1天后仍低于对照,说明NDH活性的恢复与PSI同样缓慢(图4c)。而黑暗下冷处理不引起NDH活性下降,表明其失活由光氧化胁迫造成(图4c)。离体类囊体的Fd依赖PQ还原实验中,抗霉素A(AA)抑制PGR5/PGRL1途径后,冷前样品的PQ还原活性明显下降,冷后样品下降幅度更大,说明PGR5/PGRL1依赖途径在冷胁迫下基本维持,而NDH依赖的PQ还原被强烈抑制(图4d),即NDH而非PGR5/PGRL1是黄瓜冷胁迫下失活的电子库。
BN-PAGE与二维BN/SDS-PAGE显示,对照条件下NDH亚基NdhH主要位于带1(完整PSI-NDH超复合体,同时检出PsaA、Lhca5与Lhca6)及更高分子量区;冷处理1小时后,NdhH信号额外出现在带2与带3(图5a-c)。带2检出PsaA与Lhca6但无Lhca5,对应缺失右PSI的左PSI-NDH复合体;带3既无Lhca5也无Lhca6,对应从两侧PSI脱离的NDH单体。由于单体NDH无法正常发挥功能,该解体很可能导致NDH活性丧失与随后的PSI过度还原。值得注意的是,带2在对照条件下亦少量存在,说明右PSI与NDH的结合本身较弱;而解离在冷胁迫早期(1小时)即发生,此时除NDH活性外其他稳态光合参数尚未明显变化,说明PSI-NDH超复合体不稳定是冷胁迫的早期特征事件。
鉴于Lhca介导PSI-NDH结合且是PSI光抑制中的氧化损伤靶标,研究人员检测了冷处理1–3小时后类囊体中Lhca6、Lhca3、PnsB1、PsaA与Cyt f的丰度,仅Lhca6显著下降,其余不变(图6a,b)。以甲基紫精(MV)为人工电子受体、FR光激发P700氧化以排除受体侧干扰,冷处理后P700氧化速率下降,表明Lhca功能受损(图6c);分离类囊体吸收光谱在约650 nm的Chl b富集区相对下降,支持含Chl b的天线复合体发生变化。基于已报道的冷冻电镜结构与序列比对,Lhca5基质侧A–C环与PnsB1接触(P185/L192形成疏水接触、K194经主链氢键与阳离子-π作用)(图6d);Lhca6的A–C环与NdhF接触(K(R)187形成盐桥、E181/S211形成氢键)(图6e)。盐桥的存在解释了Lhca6-NDH结合强于Lhca5-NDH;两处互作界面均有限且面向基质,易受ROS攻击而失稳。
综合以上结果,研究人员提出黄瓜冷诱导PSI光抑制的机制框架:冷胁迫抑制卡尔文-本森-巴塞姆(CBB)循环导致PSI过度还原,ROS在PSI与Lhca处产生并氧化损伤Lhca;Lhca损伤促进NDH从PSI-LHCI脱离,形成不完整组装并单体化;NDH失活后Fd电子流出受阻,进一步加剧PSI过度还原与ROS生成,最终导致PSI光抑制(上图)。讨论指出,NDH与FLV在PSI保护上功能互补,针叶树在进化中丢失了全部ndh基因,转而依赖FLV缓解早春冷伤害;而苔藓向维管植物演化过程中Lhca4与Lhca6的获得,对稳定PSI-NDH超复合体、维持胁迫下NDH功能具有重要意义。
这项研究确立了NDH作为冷胁迫下PSI关键保护因子的生理地位,回答了C3植物中NDH环境胁迫功能悬而未决的问题。
本研究使用PhytoAB抗Lhca6抗体完成了PSI-NDH超复合体解离的关键免疫检测。
PhytoAB基于工匠精神,研发高质量产品。
对于全球顶尖科研人员来说,抗体质量的好坏往往决定实验成败。PhytoAB的抗体以其卓越的稳定性、精准的靶向性和一致性,在无数科研项目中扮演了至关重要的角色。科研人员对PhytoAB的信赖并非偶然——每一款抗体都经过严格的筛选和测试,确保在各种实验条件下都能保持高效发挥。
近期,日本神户大学Takeuchi与京都大学Ifuku团队合作在New Phytologist发表题为The PSI-NDH supercomplex prevents chilling-induced PSI photoinhibition的研究论文。该研究回答两个问题:其一,利用NDH缺失水稻突变体crr6检验NDH对冷胁迫下PSI的保护作用是否具有物种普遍性;其二,以黄瓜为材料解析冷胁迫下NDH失活的分子机制。研究发现,crr6在冷胁迫下表现出显著的PSI光抑制,而表达FLV的水稻因PSI下游获得替代电子库而不发生PSI光抑制,证明NDH电子库容量对冷胁迫下PSI保护至关重要。进一步研究显示,冷胁迫破坏黄瓜PSI-NDH超复合体,Lhca损伤使NDH先脱离结合较弱的右PSI、再脱离左PSI,最终单体化并丧失活性。这项研究揭示了PSI-NDH超复合体稳定性对维持NDH功能、防止冷诱导PSI光抑制的决定性作用。
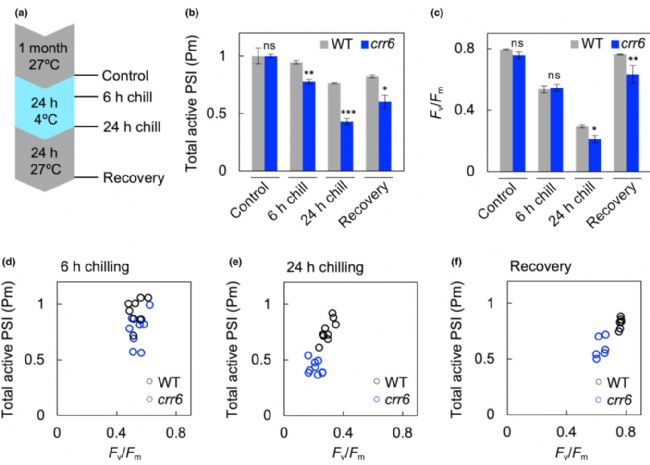
图1 野生型与NDH缺失水稻冷胁迫下的PSI与PSII光抑制
研究人员首先以NDH缺失水稻突变体crr6(一品叶背景,其NDH亚复合体SubA不能积累、NDH活性缺失)为材料,27 °C生长1个月后进行4 °C光下冷处理24小时(图1a)。最大可氧化P700(Pm,反映活性PSI总量)显示,冷处理6小时野生型未下降而crr6降至约0.8;24小时野生型约0.8、crr6仅约0.4,PSI光抑制显著加剧(图1b)。Fv/Fm在两个基因型中均下降(6小时约0.6、24小时0.2–0.3),crr6下降更明显(图1c)。27 °C恢复24小时后,crr6的Pm与Fv/Fm仍低于野生型。将Fv/Fm对Pm作图显示,冷处理6小时crr6在相近Fv/Fm下Pm明显更低,即发生了PSI特异的光抑制(图1d);24小时二者呈弱正相关,提示全叶绿体层面的PSI与PSII光抑制同时进展(图1e);恢复期crr6依然落后(图1f)。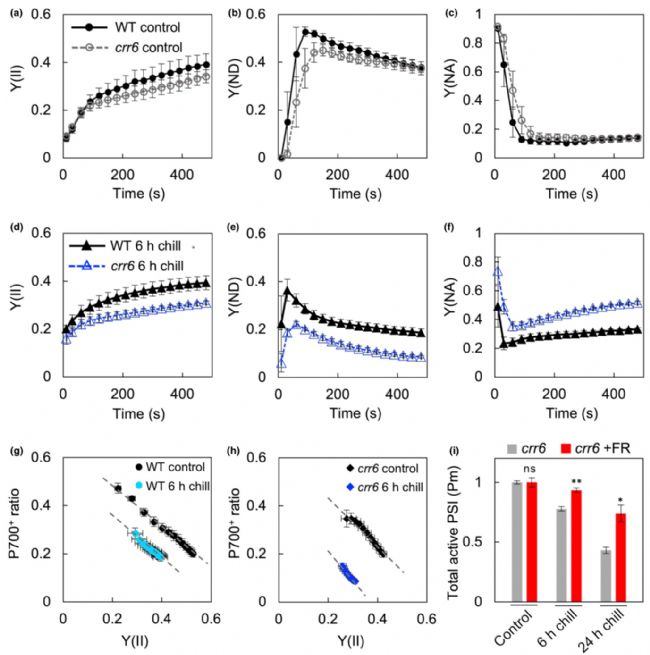
图2 野生型与crr6冷胁迫前后的光合活性
Dual-PAM测定显示,对照条件下crr6在光合诱导初期Y(II)略低、P700氧化比率Y(ND)上升延迟、未被氧化的P700比率Y(NA)更高,即PSI受体侧短暂过度还原,随光照延长差异消失(图2a-c)。冷处理6小时后,crr6的Y(II)与Y(ND)持续偏低、Y(NA)持续偏高(图2d-f)。由于Y(NA)与还原态Fd积累正相关,这表明NDH缺失使电子在PSI过度积累。将Y(ND)对Y(II)作图,给定Y(II)下crr6的Y(ND)下降幅度远大于野生型,说明其PSI更易过度还原(图2g,h)。远红光(FR)可将PSI维持于氧化态,冷胁迫下补加FR光显著缓解野生型与crr6的PSI光抑制(图2i)。综上,NDH经氧化Fd在水稻中抑制冷胁迫下的PSI过度还原,与黄瓜中的结论一致。
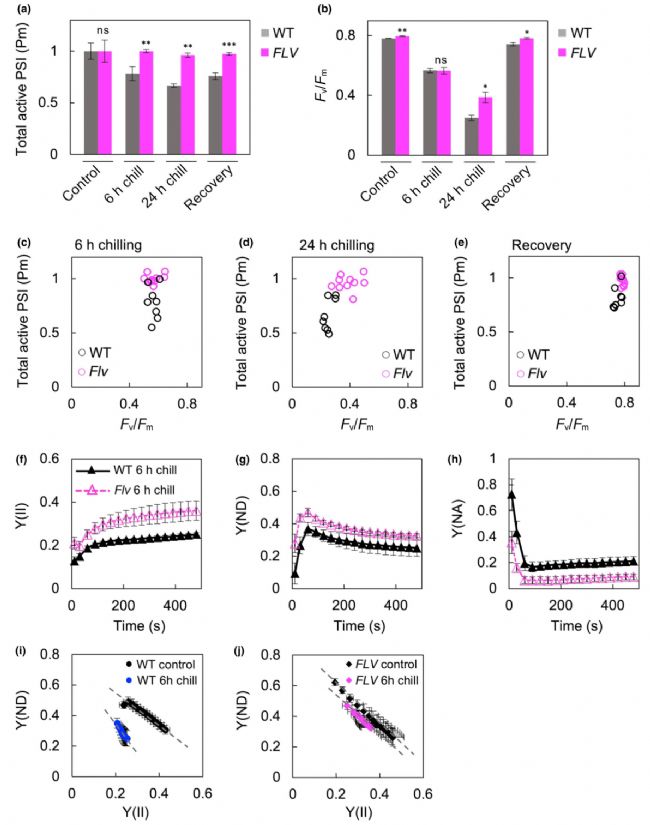
图3 野生型与FLV表达水稻冷胁迫下的PSI与PSII光抑制
为验证抑制PSI过度还原即可防止冷诱导光抑制,研究人员检测了在PSI下游安全耗散电子的FLV表达水稻(日本晴背景)。冷胁迫下,FLV株系的Pm在6与24小时均保持高位,PSI光抑制未发生,PSII光抑制亦较野生型减轻(图3a-e)。冷处理中FLV株系Y(II)与Y(ND)更高、Y(NA)更低(图3f-h);Y(II)与P700+比率关系显示,给定Y(II)下野生型的P700+比率在冷后下降,而FLV株系基本不变(图3i,j),证明其PSI过度还原被有效压制。这些结果与NDH缺失的表型互为镜像,共同证明PSI受体侧氧化能力是冷胁迫下PSI保护的决定因素。
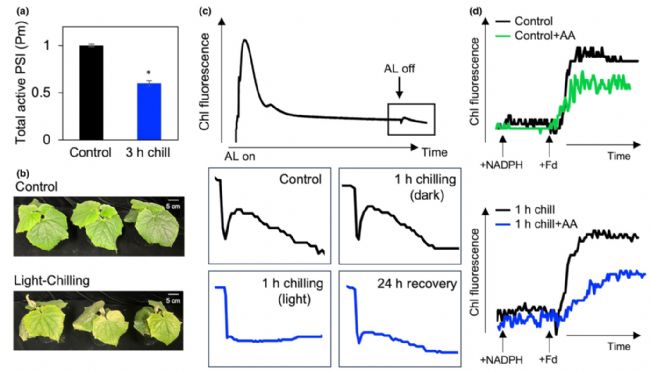
图4 黄瓜冷胁迫下的PSI光抑制与NDH活性
冷敏感黄瓜品种HG经3小时光下冷处理后活性PSI下降,回暖2天后叶片明显漂白(图4a,b)。NDH活性以照光结束后叶绿素荧光瞬时上升(PIFR)检测:光下冷处理1小时后NDH活性完全丧失,27 °C恢复1天后仍低于对照,说明NDH活性的恢复与PSI同样缓慢(图4c)。而黑暗下冷处理不引起NDH活性下降,表明其失活由光氧化胁迫造成(图4c)。离体类囊体的Fd依赖PQ还原实验中,抗霉素A(AA)抑制PGR5/PGRL1途径后,冷前样品的PQ还原活性明显下降,冷后样品下降幅度更大,说明PGR5/PGRL1依赖途径在冷胁迫下基本维持,而NDH依赖的PQ还原被强烈抑制(图4d),即NDH而非PGR5/PGRL1是黄瓜冷胁迫下失活的电子库。
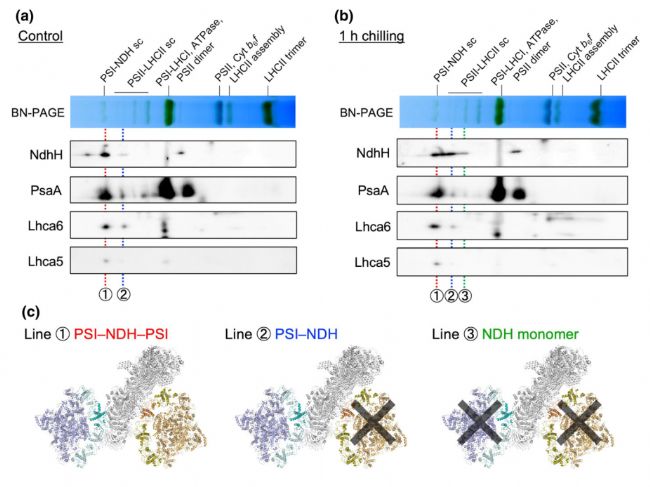
图5 冷胁迫下PSI-NDH超复合体的解体
BN-PAGE与二维BN/SDS-PAGE显示,对照条件下NDH亚基NdhH主要位于带1(完整PSI-NDH超复合体,同时检出PsaA、Lhca5与Lhca6)及更高分子量区;冷处理1小时后,NdhH信号额外出现在带2与带3(图5a-c)。带2检出PsaA与Lhca6但无Lhca5,对应缺失右PSI的左PSI-NDH复合体;带3既无Lhca5也无Lhca6,对应从两侧PSI脱离的NDH单体。由于单体NDH无法正常发挥功能,该解体很可能导致NDH活性丧失与随后的PSI过度还原。值得注意的是,带2在对照条件下亦少量存在,说明右PSI与NDH的结合本身较弱;而解离在冷胁迫早期(1小时)即发生,此时除NDH活性外其他稳态光合参数尚未明显变化,说明PSI-NDH超复合体不稳定是冷胁迫的早期特征事件。
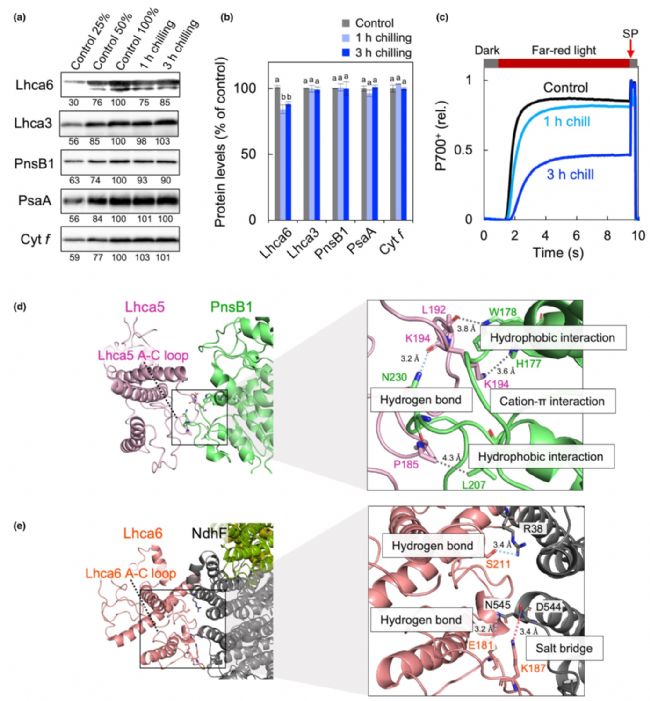
图6 冷胁迫下Lhca损伤及PSI-LHCI与NDH的互作界面
(Anti-Lhca6 购自PhytoAB Inc.)
鉴于Lhca介导PSI-NDH结合且是PSI光抑制中的氧化损伤靶标,研究人员检测了冷处理1–3小时后类囊体中Lhca6、Lhca3、PnsB1、PsaA与Cyt f的丰度,仅Lhca6显著下降,其余不变(图6a,b)。以甲基紫精(MV)为人工电子受体、FR光激发P700氧化以排除受体侧干扰,冷处理后P700氧化速率下降,表明Lhca功能受损(图6c);分离类囊体吸收光谱在约650 nm的Chl b富集区相对下降,支持含Chl b的天线复合体发生变化。基于已报道的冷冻电镜结构与序列比对,Lhca5基质侧A–C环与PnsB1接触(P185/L192形成疏水接触、K194经主链氢键与阳离子-π作用)(图6d);Lhca6的A–C环与NdhF接触(K(R)187形成盐桥、E181/S211形成氢键)(图6e)。盐桥的存在解释了Lhca6-NDH结合强于Lhca5-NDH;两处互作界面均有限且面向基质,易受ROS攻击而失稳。
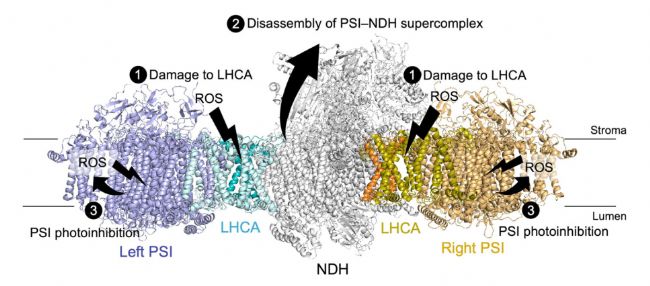
综合以上结果,研究人员提出黄瓜冷诱导PSI光抑制的机制框架:冷胁迫抑制卡尔文-本森-巴塞姆(CBB)循环导致PSI过度还原,ROS在PSI与Lhca处产生并氧化损伤Lhca;Lhca损伤促进NDH从PSI-LHCI脱离,形成不完整组装并单体化;NDH失活后Fd电子流出受阻,进一步加剧PSI过度还原与ROS生成,最终导致PSI光抑制(上图)。讨论指出,NDH与FLV在PSI保护上功能互补,针叶树在进化中丢失了全部ndh基因,转而依赖FLV缓解早春冷伤害;而苔藓向维管植物演化过程中Lhca4与Lhca6的获得,对稳定PSI-NDH超复合体、维持胁迫下NDH功能具有重要意义。
这项研究确立了NDH作为冷胁迫下PSI关键保护因子的生理地位,回答了C3植物中NDH环境胁迫功能悬而未决的问题。
- 其一,crr6与FLV株系的遗传学证据互为镜像,共同证明PSI受体侧电子库容量决定冷胁迫下PSI的命运;
- 其二,研究首次揭示冷胁迫经Lhca损伤引发PSI-NDH超复合体解离与NDH单体化这一失活机制,将超复合体稳定性确立为NDH功能维持的关键维度;
- 其三,提出的ROS产生-Lhca损伤-NDH失活-PSI过度还原的恶性循环,为冷敏感作物PSI光抑制提供了分子解释,也提示在其他报道过NDH活性变化的胁迫条件下检验超复合体结构变化的价值。
本研究使用PhytoAB抗Lhca6抗体完成了PSI-NDH超复合体解离的关键免疫检测。
特别致谢
神户大学Takeuchi与京都大学Ifuku团队在本公司购买了Anti-Lhca6进行免疫印记检测。我们深感荣幸该产品能为贵团队的创新发现提供技术支持,这既是对我们产品质量的肯定,也是激励我们持续优化产品的动力。PhytoAB基于工匠精神,研发高质量产品。
对于全球顶尖科研人员来说,抗体质量的好坏往往决定实验成败。PhytoAB的抗体以其卓越的稳定性、精准的靶向性和一致性,在无数科研项目中扮演了至关重要的角色。科研人员对PhytoAB的信赖并非偶然——每一款抗体都经过严格的筛选和测试,确保在各种实验条件下都能保持高效发挥。
中国大陆代理商:
1. 北京启维益成科技有限公司
电话:86-10-82743160/61
邮箱:info@qwbio.com
http: // www.qwbio.com
2. 上海朝铭生物科技有限公司
电话:86-19535891980(微信同号)
邮箱:phytoabsouthchina@163.com