H3K18乳酸化在肿瘤免疫微环境重塑、巨噬细胞极化等中的调控作用机制
简述
H3K18乳酸化(H3K18la)是组蛋白H3第18位赖氨酸上由乳酸驱动的一种新型酰化修饰,由p300等"写入器"催化,可被HDAC等"擦除器"逆转。作为连接细胞糖酵解状态与基因转录的核心表观标记,H3K18la在肿瘤免疫微环境重塑、巨噬细胞极化、纤维化及细胞重编程中发挥动态调控作用。
一、从Warburg效应到组蛋白密码:H3K18la如何被发现?
H3K18乳酸化(H3K18la)是组蛋白H3第18位赖氨酸上由乳酸驱动的一种新型酰化修饰,由p300等"写入器"催化,可被HDAC等"擦除器"逆转。作为连接细胞糖酵解状态与基因转录的核心表观标记,H3K18la在肿瘤免疫微环境重塑、巨噬细胞极化、纤维化及细胞重编程中发挥动态调控作用。
一、从Warburg效应到组蛋白密码:H3K18la如何被发现?
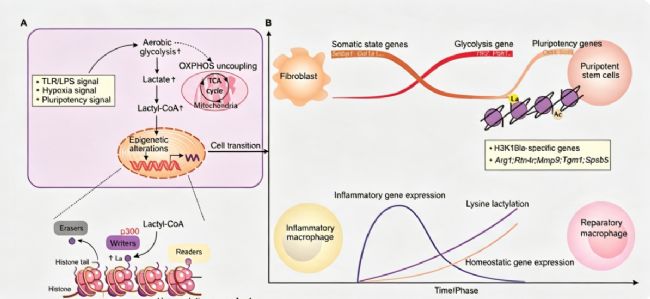
肿瘤细胞的Warburg效应导致大量乳酸积累,长期以来乳酸被视为代谢废物。2019年,芝加哥大学赵英明团队在《Nature》首次报道,乳酸可作为前体驱动一种新型组蛋白翻译后修饰——赖氨酸乳酸化,其中组蛋白H3第18位赖氨酸的乳酸化是代表性修饰之一。研究证实,补充葡萄糖、抑制线粒体呼吸或低氧处理均可增强细胞内乳酸水平并同步上调H3K18la。在M1型巨噬细胞极化后期,H3K18la在稳态基因启动子区富集,促进修复表型转化,提示其作为"代谢计时器"的功能。
二、H3K18la的"写入"与"擦除":如何被动态调控?
H3K18la的动态水平由"写入器"和"擦除器"共同维持。p300被证实是关键的组蛋白乳酸转移酶候选者,可直接催化乳酰基团从乳酰辅酶A转移至组蛋白赖氨酸。在体细胞重编程过程中,p300在多能性基因(如Oct4、Sall4、c-Myc)启动子区高度富集H3K18la,而在体细胞基因处则无此富集,提示其位点特异性。HDAC1-3等去乙酰化酶则被证实具有去乳酸化活性,可移除该修饰。值得注意的是,H3K18la的动态变化与H3K27ac等乙酰化标记呈现不同的时间动力学,暗示两者在功能上不完全重叠,可能独立或协同调控基因表达。
三、H3K18la如何参与巨噬细胞极化与炎症消退?
在炎症应答中,H3K18la展现出时序性调控特征。在M1巨噬细胞极化早期,促炎信号驱动经典炎症基因表达;而随着乳酸积累,H3K18la在后期于稳态和修复相关基因(如Arg1)的启动子区富集,促进M2样表型转化,推动炎症消退。在肿瘤相关巨噬细胞中,肿瘤源性乳酸通过提高H3K18la水平,驱动TAM向促肿瘤的M2表型极化,表达Arg1和VEGF,支持血管生成和免疫抑制。在肺纤维化模型中,博来霉素处理的小鼠肺部H3K18la水平升高,提示其参与纤维化进程中的代谢-表观调控。
四、在肿瘤和重编程中,H3K18la扮演何种角色?
在肿瘤微环境中,高糖酵解产生的乳酸通过H3K18la重塑免疫细胞功能。黑色素瘤和肺癌模型中,肿瘤相关巨噬细胞的H3K18la水平与Arg1表达呈正相关,而与组蛋白乙酰化水平无关,突显了H3K18la的特异性功能。在细胞重编程中,诱导多能干细胞过程中伴随从氧化磷酸化到糖酵解的代谢转换,H3K18la在多能性基因启动子区富集,与H3K27ac协同调控染色质开放状态,促进多能性基因激活。
五、H3K18la的研究前景与未解问题
尽管进展迅速,H3K18la领域仍存在关键空白:其特异性"读取器"尚未明确;细胞核内局部乳酸浓度如何调控位点选择性乳酸化仍不清楚;H3K18la与其他酰化修饰(如乙酰化、巴豆酰化)在相同赖氨酸位点上的竞争与串扰机制有待阐明。未来研究需结合高分辨率质谱、CUT&Tag和单细胞表观技术,解析H3K18la在特定细胞类型和病理阶段的动态功能。
结语
H3K18乳酸化作为连接细胞代谢状态与基因转录的新型表观标记,在炎症、纤维化、肿瘤免疫和细胞重编程中发挥着动态调控作用。深入理解其"写入-擦除-读取"机制,以及与其他组蛋白修饰的协同或竞争关系,将为靶向代谢-表观交互的疾病治疗提供新视角。
在H3K18la等乳酸化修饰的功能研究中,高特异性的泛乳酸化抗体是实现全局性修饰水平监测和位点富集的基础。斯达特提供 L-Lactyl Lysine Rabbit Polyclonal Antibody。该泛抗体可特异性识别蛋白质上的L-乳酰化赖氨酸残基,适用于Western Blot、免疫沉淀及乳酸化肽段富集等多种实验场景,可有效支持科研人员在H3K18la相关机制及乳酸化修饰功能研究中的核心检测需求。
产品信息
本文由斯达特技术专家团审核发布