新冠研究前沿:在iPS中利用CRISPRi系统发现病毒感染新机制(NEPA21)
新型冠状病毒肺炎(COVID-19)是一种严重的急性呼吸道传染性疾病,其由急性呼吸综合征冠状病毒SARS-CoV-2感染所致。自COVID-19新冠肺炎疫情爆发至今,已两年有余。除了疫苗接种,目前医学界还没有针对治疗新冠的特效药问世。而关于其感染机制的研究,对于新冠药物的研发至关重要。
据报导,SARS-CoV-2的感染需要许多受体和蛋白酶。在感染期间,SARS-CoV-2刺突(S)蛋白与细胞表面表达的血管紧张素转换酶2(ACE2)结合,并被跨膜蛋白酶丝氨酸2(TMPRSS2)等蛋白酶切割,导致S蛋白分裂为S1和S2结构域。SARS-CoV-2通过S2结构域融合和侵入细胞。因此,SARS-CoV-2感染被认为是依赖于宿主细胞中ACE2和TMPRSS2的表达。然而,除了ACE2和TMPRSS2之外的其他蛋白分子也在SARS-CoV-2感染中起着重要作用。
近期,有研究学者通过通过CRISPR/Cas9基因编辑系统和表达ACE2的人类诱导多能干细胞(iPS)检测了神经纤毛蛋白-1(NRP1)、碱性蛋白BSG、跨膜丝氨酸蛋白酶(TMPRSS)和组织蛋白酶(CTS)在SARS-CoV-2感染中的作用。该研究发现双重敲降TMPRSS2和组织蛋白酶B(CTSB)可将病毒载量降低至0.036%±0.021%。CTPB抑制剂CA-074甲酯和TMPRSS2抑制剂Camostat的组合更将病毒载量降低至0.0078%±0.0057%。这些研究结果都在四种SARS-CoV-2的变异株(β.1.3、β.1.1.7、β.1.351和β.1.1.248)中得到证实。同时使用这两种药物都可将人类男性和女性iPS中的病毒载量降低到0.01%以下。这些发现表明,对于TMPRSS2和CTSB的靶向化合物表现出高效的抗病毒效果,这可以为COVID-19的治疗药物研发提供一种思路。
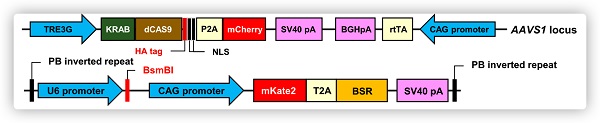
为了阐明除ACE2以外的受体和蛋白酶在SARS-CoV-2感染中的功能,该研究通过使用过表达ACE2的iPS(ACE2 iPS)和CRISPRi系统抑制了BSG、CTSB和TMPRSS2基因的表达水平,并设计了针对这些基因的sgRNA。用表达sgRNAs、mKate2和抗病毒基因的质粒电转染iPS,如下图所示。
在比较通过dCas9蛋白表达抑制ACE2的iPS中目标基因的表达水平后,对细胞进行SARS-CoV-2感染,如下图所示。
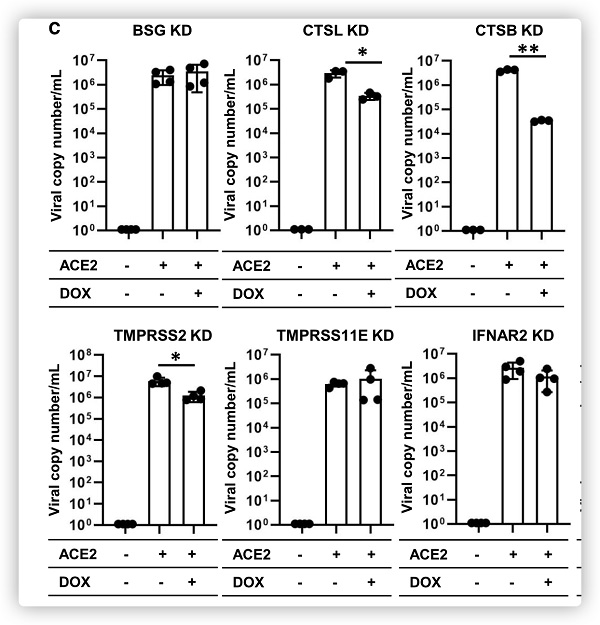
结果发现CTSL、CTSB和TMPRSS2的抑制使得ACE2 iPS中的病毒RNA拷贝数分别降低至11.7%±3.77%、0.84%±0.062%和20.6%±10.4%。TMRPSS2的抑制始终减少了刺突(S)蛋白的ACE2 iPS的数量。这些结果表明,CTSB、CTSL和TMPRSS2参与了ACE2 iPS的SARS-CoV-2感染。
基于上述发现,该研究团队接下来探究了CTSB、CTSL和TMPRSS2抑制剂是否能抑制ACE2 iPS中的SARS-CoV-2感染。用SARS-CoV-2感染表达ACE2的iPS后,细胞在CA-074甲酯(CA-074 Me,CTSB抑制剂)、Z-Phe-Tyr(tBu)-重氮乙基酮(CTSL抑制剂)、卡莫司他(TMPRSS2抑制剂)或纳法莫司他(TMPRSS2抑制剂)的存在下培养,如下图所示。

最后,该研究团队检测了TMRPSS2和CTSB的双重敲降机制对于ACE2 iPS的SARS-CoV-2感染的影响作用。结果发现,感染的CTSB和TMPRSS2双基因敲降细胞中的病毒RNA拷贝数低于感染的单基因敲降细胞中的病毒RNA拷贝数,如下图所示。

CRISPR/Cas9基因编辑系统可以使用转录阻遏物结构域(KRAB)和短引导RNA(sgRNA)融合的降解蛋白Cas9(dCas9)选择性地抑制靶基因的表达。CRISPRi和iPS的组合可以将靶基因的表达抑制到1%或更低。此外,在由iPS诱导的体细胞中,该表达也保持低水平。到目前为止,利用iPS衍生的体细胞进行的SARS-CoV-2研究已得到广泛开展。
值得一提的是,为了进行CRISPRi实验,该研究团队使用来自NEPA GENE的NEPA21高效基因转染系统,并最终获得了成功理想的实验结果。
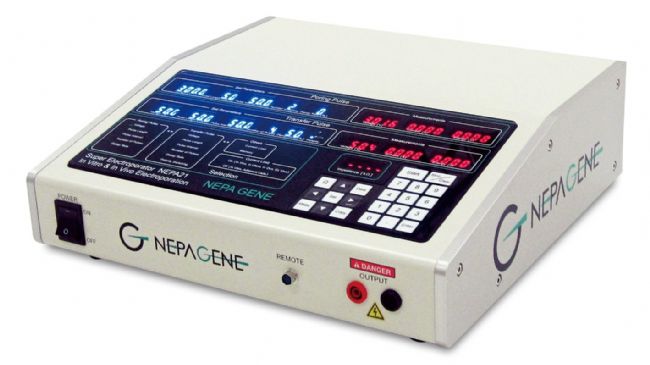
NEPA21高效基因转染系统采用独特设计的电转程序,可应用细胞、离体组织或动物活体的转染。配合独有的电压衰减(Voltage/Decay)设计,可在获得高转染效率的同时,提高细胞存活率。专门针对难转染的原代免疫细胞、干细胞、神经细胞、活体动物、受精卵及宫内胚胎等转染。目前已有众多应用文献发表在高水平学术期刊,是基因编辑、细胞免疫等前沿生物研究中的首选品牌!
1、采用全新设计的电转程序,电压衰减(Voltage Decay)模式;基因导入+反向导入模式;
2、不需要特殊转染试剂辅助,节省实验成本;
3、电转程序中的各项参数实时可见、可调,特别适用于优化原代细胞、非常见细胞的电转参数。
常用配件
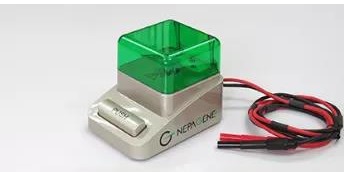
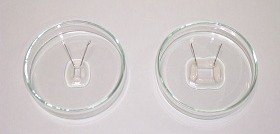
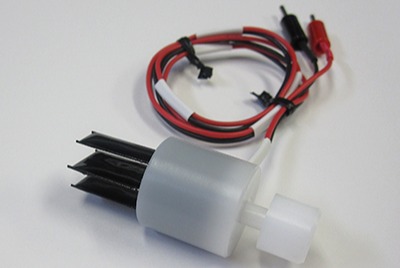
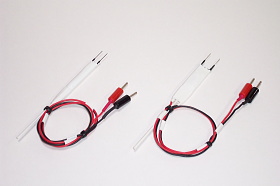
注:NEPA GENE共有250多种电极可选,用户可自由选配
扫描以下二维码填写相关信息
即可尽快为您安排机器DEMO
关于艾贝泰
艾贝泰生物技术有限公司 细胞医学部 根据细胞存储、细胞治疗技术研发、应用研究等不同领域的特点,推出针对性应用技术的细胞治疗平台产品链。欢迎电话拨打020-3482 1111 8245
或者邮件cell@applitechpharma.com咨询相关产品信息。
1. R Hashimoto, A Sakamoto, S Deguchi, R Yi, E Sano, A Hotta, K Takahashi, S Yamanaka, K Takayama. (2021). Dual inhibition of TMPRSS2 and Cathepsin B prevents SARS-CoV-2 infection in iPS cells, ScienceDirect, 26,1107-1114.
2. Seyran, M., Takayama, K., Uversky, V.N., Lundstrom, K., Palu, G., Sherchan, S.P., Attrish, D., Rezaei, N., Aljabali, A.A.A., Ghosh, S., et al. (2021). The structural basis of accelerated host cell entry by SARS-CoV-2y. FEBS J. 288, 5010–5020.
3. Daly, J.L., Simonetti, B., Klein, K., Chen, K.-E., Williamson, M.K., Antón-Plágaro, C., Shoemark, D.K., Simón-Gracia, L., Bauer, M., and Hollandi, R. (2020). Neuropilin-1 is a host factor for SARS-CoV-2 infection. Science 370, 861–865.
4. Cantuti-Castelvetri, L., Ojha, R., Pedro, L.D., Djannatian, M., Franz, J., Kuivanen, S., van der Meer, F., Kallio, K., Kaya, T., and Anastasina, M. (2020). Neuropilin-1 facil- itates SARS-CoV-2 cell entry and infectivity. Science 370, 856–860.
5. Wang, K., Chen, W., Zhang, Z., Deng, Y., Lian, J.-Q., Du, P., Wei, D., Zhang, Y., Sun, X.-X., and Gong, L. (2020). CD147-spike protein is a novel route for SARS-CoV-2 infection to host cells. Signal Transduct. Target. Ther. 5, 1–10